ecosistemas
ISSN 1697-2473
Open access / CC BY-NC 4.0
© 2026 Los autores [ECOSISTEMAS no se hace responsable del uso indebido de material sujeto a derecho de autor] / © 2026 The authors [ECOSISTEMAS is not responsible for the misuse of copyrighted material]
Ecosistemas 35(3): 3241 [septiembre - diciembre / September - December, 2026]: https://doi.org/10.7818/ECOS.3241
Editora asociada / Associate editor: Jorge Garrido-Bautista
ARTÍCULO DE INVESTIGACIÓN / RESEARCH ARTICLE
Diversidad taxonómica y funcional de hormigas en viñedos convencionales y orgánicos de Mendoza, Argentina
Carla Vanina Dagatti1,*  , Florencia Fernández Campón2 , Silvia Claver3
(1) Instituto Nacional de Tecnología Agropecuaria (INTA). Estación Experimental Agropecuaria Mendoza. Mendoza, Argentina.
(2) Facultad de Ciencias Exactas y Naturales, Universidad Nacional de Cuyo. Mendoza, Argentina. Laboratorio de Entomología, IADIZA, CCT Mendoza, CONICET. Mendoza, Argentina.
(3) Laboratorio de Entomología, IADIZA, CCT Mendoza, CONICET. Mendoza, Argentina.
* Autora de correspondencia / Corresponding author: C. Dagatti [dagatti.carla@inta.gob.ar]
|
> Recibido / Received: 30/03/2026 – Aceptado / Accepted: 07/07/2026 |
Cómo citar / How to cite: Dagatti, C. V., Fernández Campón, F., & Claver, S. 2026. Diversidad taxonómica y funcional de hormigas en viñedos convencionales y orgánicos de Mendoza, Argentina. Ecosistemas 35(3): 3241. https://doi.org/10.7818/ECOS.3241
|
Diversidad taxonómica y funcional de hormigas en viñedos convencionales y orgánicos de Mendoza, Argentina Resumen: Las hormigas constituyen un grupo ampliamente distribuido, abundante y sensible a las perturbaciones ambientales, por lo que se las considera bioindicadoras en agroecosistemas. En este estudio se analizó la comunidad de hormigas epígeas en viñedos de Luján de Cuyo (Mendoza, Argentina) bajo dos sistemas de producción, orgánico y convencional, con el objetivo de comparar su riqueza, abundancia, composición y grupos funcionales. El muestreo se realizó en cuatro parcelas (dos por sistema) durante las cuatro estaciones climáticas de 2014, mediante trampas de caída y recolección manual. Los ejemplares se identificaron a nivel de especie. Se registraron 12 975 hormigas, pertenecientes a 19 especies, 9 géneros y 4 subfamilias. La abundancia fue aproximadamente tres veces mayor en los viñedos orgánicos, que concentraron más del 80 % de los individuos, especialmente en aquellos con cobertura vegetal y mayor heterogeneidad. A pesar de esta diferencia en abundancia, la riqueza, diversidad y composición de especies resultaron similares entre sistemas, con dominancia de los géneros Pheidole y Dorymyrmex. Los patrones de similitud observados muestran que la estacionalidad contribuyó a la variación en la composición de las comunidades de hormigas. Además, los menores valores de riqueza específica se registraron durante el invierno. Los grupos funcionales dominantes en ambos sistemas fueron las mirmicinas generalistas y las especialistas en clima frío y oportunistas. Los resultados sugieren que el manejo orgánico favorece la abundancia y una distribución más equitativa de especies, posiblemente debido a una mayor complejidad del hábitat. Sin embargo, las conclusiones son exploratorias debido al bajo número de parcelas. Palabras clave: diversidad; hormigas epígeas; manejo de agroecosistemas; viñedo Taxonomic and functional diversity of ants in conventional and organic vineyards of Mendoza, Argentina Abstract: Ants are a widely distributed and abundant group that is sensitive to environmental disturbances and are therefore considered useful bioindicators in agroecosystems. In this study, the epigeic ant community in vineyards of Luján de Cuyo was analyzed under two production systems (organic and conventional) to compare species richness, abundance, community composition, and functional groups. Sampling was conducted in four plots (two per system) throughout the four seasons of 2014 using pitfall traps and manual collection. Specimens were identified to species level. A total of 12 975 ants were recorded, representing 19 species, 9 genera, and 4 subfamilies. Ant abundance was approximately three times higher in organic vineyards, which accounted for more than 80% of all individuals, particularly in sites with vegetation cover and greater habitat heterogeneity. Despite this difference in abundance, species richness, diversity, and community composition were similar between production systems, with the genera Pheidole and Dorymyrmex being dominant. The observed similarity patterns indicate that seasonality contributed to variation in the composition of ant communities. In addition, the lowest species richness values were recorded during winter. The dominant functional groups in both systems were generalized myrmicines and opportunistic cold-climate specialists. These results suggest that organic management promotes higher ant abundance and a more even distribution of species, possibly as a consequence of increased habitat complexity. However, these findings should be interpreted with caution due to the limited number of study plots. Keywords: agroecosystem management; diversity; epigeic ants; vineyard |
Introducción
Aproximadamente el 13 % de la superficie terrestre de Argentina es cultivable (Banco Mundial, 2024). Dentro de este contexto, si bien la soja predomina a nivel nacional (Global Yield Gap Atlas, 2023), la viticultura constituye la principal actividad agrícola en la región de Cuyo (Instituto Nacional de Vitivinicultura, 2024), donde los viñedos dominan el paisaje rural. Históricamente, estos sistemas han registrado bajos niveles de daño por insectos (Becerra, 2001), en contraste con viñedos de otras regiones del mundo afectados por una amplia diversidad de plagas, incluyendo hemípteros, lepidópteros, ácaros, coleópteros y trips (Flaherty et al., 1981; Prado, 1991).
Sin embargo, en las últimas décadas se ha observado un cambio en esta dinámica. En Mendoza, plagas emergentes como la cochinilla Planococcus ficus (Hemiptera: Pseudococcidae) y la polilla de la vid Lobesia botrana (Tortricidae: Lepidoptera) han adquirido relevancia económica. Esta última, considerada cuarentenaria en Argentina, no solo daña directamente los racimos, sino que también favorece infecciones por Botrytis cinerea Pers., reduciendo el rendimiento y la calidad del cultivo. Desde su detección en 2010, el control de L. botrana ha implicado un aumento en el uso de pesticidas, lo que a su vez se ha asociado con la reaparición de plagas previamente poco frecuentes (Dagatti, observación personal). Las hormigas cortadoras de hojas son consideradas plagas, particularmente en sistemas orgánicos (Dagatti, 2016; Dagatti y Vargas, 2021).
En este contexto, comprender los procesos ecológicos que ocurren en los viñedos resulta clave. La heterogeneidad del paisaje y las prácticas de manejo influyen tanto en la biodiversidad como en la incidencia de plagas (Matson et al., 1997). La viticultura orgánica, aunque menos extendida que la convencional, ha crecido en respuesta a la demanda de productos diferenciados. Este sistema excluye insumos sintéticos, promueve el uso de recursos locales y mantiene hábitats cultivados y no cultivados, lo que favorece una mayor diversidad de organismos (Stupino et al., 2008; Sarandón y Flores, 2014). Asimismo, una mayor heterogeneidad estructural se asocia con un mejor desempeño de los servicios ecosistémicos en comparación con sistemas simplificados de altos insumos (Sarandón y Flores, 2014). En Mendoza, las prácticas orgánicas incluyen el uso de estiércol, compost, biofertilizantes, cultivos de cobertura y, en menor medida, productos micorrízicos o derivados de algas (Uliarte et al., 2018), en un sistema en expansión.
A pesar de ello, la agricultura continúa siendo un factor importante de pérdida de biodiversidad, debido principalmente al uso intensivo de agroquímicos (Altieri, 1999; Swift et al., 2004; Sarandón y Flores, 2014; Ramirez-Suárez et al., 2024). Dado que la biodiversidad es clave para el funcionamiento de los agroecosistemas y la provisión de servicios ecosistémicos, comprender estas relaciones resulta fundamental. En este sentido, las especies indicadoras constituyen herramientas útiles para evaluar cambios ecológicos (Birkhofer et al., 2018). Las hormigas son consideradas excelentes bioindicadores de la alteración del hábitat y de la salud ambiental debido a su sensibilidad a los cambios en el manejo del suelo y la biodiversidad (Schifani et al., 2026). En los viñedos, proporcionan diversos servicios ecosistémicos, entre ellos el control biológico de plagas mediante la depredación de insectos perjudiciales para la vid (Thomson y Hoffmann, 2009; Blaise et al., 2021; Schifani et al., 2026). Asimismo, contribuyen a la dispersión y enterramiento de semillas, favoreciendo tanto el control natural de malezas como la germinación y supervivencia de las plantas (Aranda-Rickert y Fracchia, 2012; Karnish, 2024; Schifani et al., 2026). Además, actúan como “ingenieras del ecosistema”, mejorando la estructura, aireación, infiltración de agua y fertilidad del suelo mediante la construcción de nidos y la redistribución de materia orgánica, lo que favorece los ciclos de nutrientes (Folgarait, 1998) y el crecimiento de las vides. En regiones áridas y semiáridas, además, cumplen un rol importante en la modificación del suelo y en la estructura de la vegetación (Rios-Casanova et al., 2004; Evans et al., 2011).
Sin embargo, algunas especies pueden generar perjuicios, ya que son consideradas plagas importantes en viñedos y establecen relaciones mutualistas con insectos productores de melaza, como pulgones y cochinillas, a los que protegen de sus enemigos naturales a cambio de alimento (Montoya-Lerma et al., 2012; Dagatti y Vargas, 2021; Schifani et al., 2026).
Este estudio tuvo como objetivo describir la comunidad de hormigas en viñedos con manejo orgánico y convencional, identificando estacionalmente las especies presentes, estimando su riqueza y abundancia, analizando las diferencias entre ambos sistemas y determinando sus grupos funcionales. Se planteó la hipótesis de que los viñedos orgánicos, con coberturas vegetales, presentarían una mayor diversidad de hormigas que los viñedos convencionales o con interfilares sin vegetación.
Material y métodos
Área de estudio
El estudio se llevó a cabo en Luján de Cuyo, provincia de Mendoza, en el centro-oeste de Argentina. El muestreo se realizó durante 2014 en cuatro períodos correspondientes a las estaciones del año: enero (verano), abril (otoño), julio (invierno) y octubre (primavera).
Se seleccionaron cuatro parcelas de viñedo: dos manejadas bajo prácticas agrícolas convencionales y dos bajo protocolos orgánicos, ubicadas en dos zonas de Luján de Cuyo (dos en Agrelo y dos en Drummond). Las parcelas se organizaron en pares que combinaron ambos sistemas de producción (convencional y orgánico) con el objetivo de controlar los efectos espaciales sobre la composición y abundancia de la comunidad de hormigas. Las principales características de las parcelas de viñedo se presentan en la Tabla 1.
Tabla 1. Características de las parcelas de viñedo experimentales con sistemas de manejo convencional y orgánico.
Table 1. Characteristics of experimental vineyard plots with conventional and organic management systems.
|
|
Parcelas experimentales |
|||
|
|
1 |
2 |
3 |
4 |
|
Área |
2.6 ha |
2.7 ha |
1.4 ha |
5.78 ha |
|
Localidad |
Drummond |
Drummond |
Agrelo |
Agrelo |
|
Cultivar |
Cabernet sauvignon |
Sauvignon blanc |
Aspirant bouchet |
Cabernet sauvignon |
|
Sistema de producción |
orgánico |
convencional |
orgánico |
convencional |
|
Riego |
inundación |
inundación |
inundación |
goteo |
|
Sistema de conducción |
espaldero |
espaldero |
espaldero |
espaldero |
|
Contexto ecológico |
corredor biológico con vegetación natural y cobertura vegetal interfilar |
viñedo |
viñedo |
viñedo |
Métodos de muestreo
En cada parcela, se establecieron aleatoriamente ocho cuadrados de 3 × 3 m en el espacio entre hileras. Se colocaron trampas de caída (Pitfall) en los cuatro vértices de cada cuadrado, considerándose cada uno una unidad de muestreo (Fig. 1). Este diseño arrojó ocho unidades de muestreo por parcela. Las trampas se colocaron al inicio de cada período de muestreo (cuatro períodos) y permanecieron activas durante una semana. En total, se utilizaron 32 trampas por parcela a lo largo del estudio.
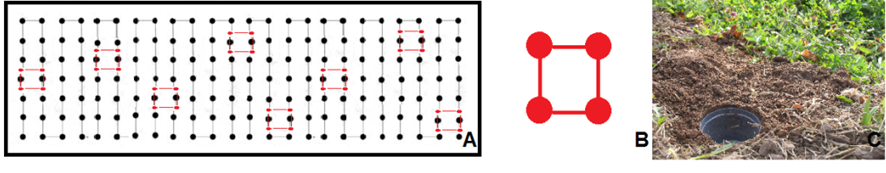
Figura 1. Diseño de muestreo las parcelas en estudio. A) Disposición espacial de las unidades de muestreo (en rojo) compuestas por cuatro trampas de caída (una en cada vértice). Los puntos negros indican las hileras de vides. B) Disposición de las trampas dentro de un cuadrado de 3 × 3 m. C) Trampa de caída.
Figure 1. Sampling design in each plot. A) Spatial arrangement of the sampling units (in red) composed of four pitfall traps (one at each vertex). The black dots indicate the rows of vines. B) Arrangement of the traps within a 3 × 3 m square. C) Pitfall trap.
El contenido de las 32 trampas de cada parcela se transportó al laboratorio, se tamizó con un colador de malla fina y se conservó en envases plásticos etiquetados con etanol al 70 % para su posterior análisis. Las muestras de las cuatro trampas de caída por parcela se combinaron para su procesamiento.
Por otra parte, se realizó un muestreo por cuadrantes una vez por temporada. Se colocó aleatoriamente un marco de madera de 1 m2 en seis puntos de cada parcela (tres en las hileras de plantación y tres en los espacios interfilares) en tres momentos del día (07:00, 12:00 y 17:00 horas). Se recolectaron todas las hormigas presentes dentro el marco 1 m2 durante un período de 5 min. Los especímenes colectados se llevaron al laboratorio para su separación, identificación y enumeración por especie. La identificación de hormigas se realizó según las claves de Gallardo (1916), Kusnezov (1951, 1953, 1956, 1978), Goncalves (1961), Bolton (1994), Cuezzo (2000) y Fernández (2003), complementadas con la colección de referencia del Laboratorio de Entomología del Instituto Argentino de Investigaciones de Zonas Áridas (IADIZA).
Análisis de datos
Se evaluó la representatividad del muestreo mediante estimadores de completitud basados en la riqueza observada y esperada (Jackknife1), empleando datos de trampas de caída y colecta manual (Colwell y Coddington, 1994; Gotelli y Colwell, 2001). La abundancia específica y total fue evaluada mediante conteos de individuos. Con el fin de describir los patrones de similitud en la composición de las comunidades de hormigas, se realizó un análisis de agrupamiento jerárquico. Para ello, se construyó una matriz de disimilitud utilizando el índice de Bray-Curtis a partir de las abundancias de las especies. Los agrupamientos se obtuvieron mediante el método UPGMA (Unweighted Pair Group Method with Arithmetic Mean). Previamente, las variables fueron estandarizadas. La calidad de representación del dendrograma se evaluó mediante la correlación cofenética. Los análisis se efectuaron con el sofware InfoStat (Di Rienzo et al., 2020). La diversidad se caracterizó mediante los índices de Shannon-Weaver, Simpson, Pielou e inverso de Simpson, interpretados según los criterios de Magurran (1988) y Colwell (2013). Para analizar la biodiversidad y la estructura de las comunidades se realizaron curvas de rango-abundancia. Finalmente, las especies fueron clasificadas en grupos funcionales según sus hábitos alimenticios (Claver et al., 2014).
Debido al diseño del estudio y al bajo número de parcelas por tratamiento, los análisis realizados deben interpretarse como aproximaciones exploratorias, y los patrones observados se presentan con fines descriptivos.
Resultados
Se recolectaron 12 975 hormigas en total, de las cuales 2991 provinieron de viñedos convencionales y 9984 de viñedos orgánicos. La abundancia total registrada en los sistemas orgánicos fue aproximadamente tres veces mayor que en los sistemas convencionales (Fig. 2).
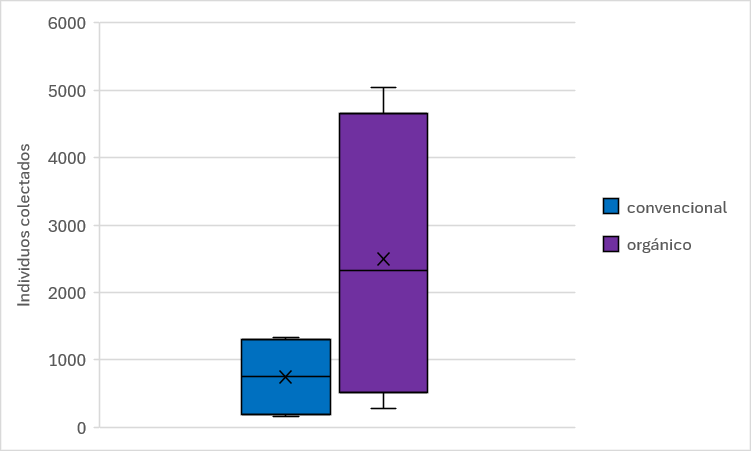
Figura 2. Abundancia de especies de hormigas presentes en las parcelas con manejo convencional y orgánico de Luján de Cuyo, Mendoza, Argentina.
Figure 2. Abundance of ant species recorded in vineyards under conventional and organic management in Luján de Cuyo, Mendoza, Argentina.
En los viñedos orgánicos se identificaron cuatro subfamilias, nueve géneros y 19 especies, mientras que en los convencionales se registraron tres subfamilias, ocho géneros y 17 especies. Más del 80 % de los individuos totales se capturó en parcelas orgánicas. La Tabla 2 presenta las abundancias relativas de todas las especies registradas.
Las especies dominantes fueron Dorymyrmex wolffhuegeli Forel, Pheidole bergi Mayr y Pheidole spinidodis Mayr, presentes en más del 60 % de las trampas en ambos sistemas. La composición específica fue ampliamente compartida entre tipos de manejo, aunque Hypoponera opacior Forel y Dorymyrmex sp.1 se registraron exclusivamente en viñedos orgánicos, mientras que Acromyrmex lobicornis Emery y Strumigenys rogeri Emery solo se encontraron en viñedos convencionales (Tabla 2).
En cuanto a las subfamilias, Myrmicinae presentó la mayor abundancia en ambos sistemas de producción, seguida de Dolichoderinae, Formicinae y Ponerinae, esta última presente únicamente en los viñedos orgánicos. El género Pheidole Westwood fue numéricamente dominante tanto en las parcelas convencionales como en las orgánicas (Tabla 2).
Tabla 2. Abundancia relativa de hormigas capturadas en las parcelas con manejo convencional y orgánico de Luján de Cuyo, Mendoza, Argentina.
Table 2. Relative abundance of ants captured in plots with conventional and organic management in Luján de Cuyo, Mendoza, Argentina.
|
|
Sistema de producción |
|||||||||
|
Convencional |
Orgánico |
|||||||||
|
Subfamilia |
Taxa |
2 |
4 |
1 |
3 |
|||||
|
n |
% |
n |
% |
n |
% |
n |
% |
|
||
|
Formicidae |
Brachymyrmex sp. |
28 |
1.28 |
33 |
4.14 |
75 |
1.1 |
42 |
1.35 |
|
|
Camponotus mus |
33 |
1.5 |
3 |
0.38 |
185 |
2.7 |
0 |
0 |
|
|
|
Camponotus punctulatus |
145 |
6.61 |
26 |
3.26 |
116 |
1.7 |
20 |
0.64 |
|
|
|
Myrmicinae |
Amoimyrmex striatus |
10 |
0.45 |
0 |
0 |
55 |
0.8 |
4 |
0.13 |
|
|
Acromyrmex lobicornis |
0 |
0 |
2 |
0.25 |
0 |
0 |
0 |
0 |
|
|
|
Pheidole bergi |
435 |
19.8 |
73 |
9.16 |
1418 |
20.6 |
1554 |
49.9 |
|
|
|
Pheidole spininodis |
453 |
20.6 |
2 |
0.25 |
883 |
12.8 |
104 |
3.34 |
|
|
|
Pheidole aberrans |
9 |
0.41 |
0 |
0 |
9 |
0.1 |
34 |
1.09 |
|
|
|
Pheidole triconstricta |
0 |
0 |
33 |
4.14 |
4 |
0.1 |
0 |
0 |
|
|
|
Solenopsis sp.1 |
166 |
7.57 |
163 |
20.4 |
651 |
9.4 |
311 |
10 |
|
|
|
Solenopsis sp.2 |
32 |
1.46 |
70 |
8.8 |
143 |
2.1 |
78 |
2.51 |
|
|
|
Solenopsis sp.3 |
66 |
3.01 |
45 |
5.65 |
216 |
3.1 |
19 |
0.6 |
|
|
|
Solenopsis sp.4 |
13 |
0.59 |
5 |
0.63 |
22 |
0.3 |
7 |
0.23 |
|
|
|
Strumigenys rogeri |
0 |
0 |
2 |
0.25 |
0 |
0 |
0 |
0 |
|
|
|
Ponerinae |
Hypoponera opacior |
0 |
0 |
0 |
0 |
0 |
0.06 |
0 |
0 |
|
|
Dolichoderinae |
Dorymyrmex wolffhugeli |
779 |
35.5 |
188 |
23.6 |
2200 |
32 |
350 |
11.2 |
|
|
Dorymyrmex flavescens |
0 |
0 |
5 |
0.63 |
0 |
0 |
1 |
0.03 |
|
|
|
Dorymyrmex sp.1 |
0 |
0 |
0 |
0 |
1 |
0.01 |
0 |
0 |
|
|
|
Forelius chalybaeus |
25 |
1.14 |
147 |
18.4 |
891 |
12.9 |
587 |
18.8 |
|
|
|
|
∑ |
2194 |
100 |
797 |
100 |
6873 |
100 |
3111 |
100 |
|
El análisis de agrupamiento jerárquico basado en la distancia de Bray-Curtis mostró una alta similitud general entre las comunidades de hormigas registradas en los distintos viñedos y estaciones del año. Se observó una tendencia al agrupamiento de las muestras correspondientes a las estaciones cálidas (verano y primavera), mientras que varias muestras de otoño e invierno conformaron agrupamientos separados. No se detectó una separación clara entre las parcelas con manejo orgánico y convencional, dado que muestras de ambos sistemas aparecieron mezcladas dentro de los conglomerados obtenidos. Las muestras correspondientes a la parcela 3 en primavera y a la parcela 1 en invierno presentaron la composición más diferenciada respecto del resto de las muestras (Fig. 3).
Las curvas de rango-abundancia revelaron que las especies presentaban una predominancia numérica similar en viñedos con diferentes sistemas de producción. Las dos especies más abundantes en ambos sistemas (Dorymyrmex wolffhügeli Forel y Pheidole bergi Mayr) fueron las mismas, aunque sus abundancias relativas variaron (Fig. 4).
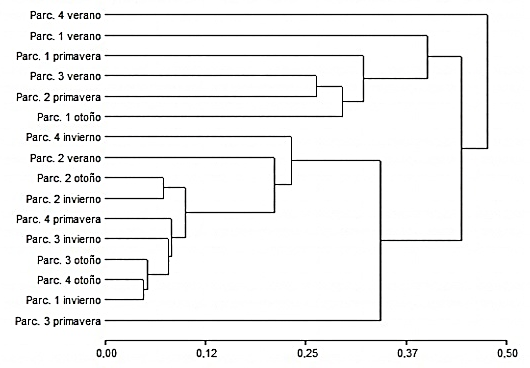
Figura 3. Dendrograma de similitud de las comunidades de hormigas presentes en las parcelas en estudio en Luján de Cuyo, Mendoza, Argentina. El análisis se realizó mediante agrupamiento jerárquico UPGMA utilizando el índice de Bray-Curtis sobre las abundancias de las especies. Las ramas representan el grado de similitud en la composición de las comunidades entre muestras (correlación cofenética = 0.885).
Figure 3. Similarity dendrogram of ant communities recorded in the study plots located in Luján de Cuyo, Mendoza, Argentina. The analysis was performed using hierarchical clustering (UPGMA) based on the Bray–Curtis similarity index calculated from species abundances. Branch lengths represent the degree of similarity in community composition among samples (cophenetic correlation = 0.885).
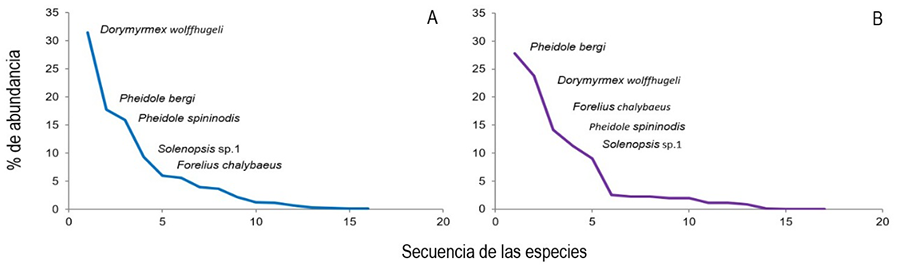
Figura 4. Curvas de rango-abundancia que muestran las tres especies más abundantes en viñedos con sistemas de producción convencional (A) y orgánico (B) en Luján de Cuyo, Mendoza, Argentina.
Figure 4. Rank-abundance curves showing the three most abundant species in vineyards with conventional (A) and organic (B) production systems in Luján de Cuyo, Mendoza, Argentina.
A pesar de que se observaron diferencias en la abundancia entre los distintos sistemas de producción, la riqueza de especies se mantuvo similar. En relación con las estaciones climáticas, los viñedos bajo manejo convencional presentaron los mayores valores de riqueza durante la primavera y el verano. En las parcelas con sistema de producción orgánico, la riqueza alcanzó sus valores máximos en primavera y otoño. Los valores más bajos de riqueza para ambos sistemas de producción se registraron durante el invierno (Tabla 3).
Tabla 3. Riqueza y abundancia de hormigas capturadas en ambos sistemas de producción en Luján de Cuyo, Mendoza, Argentina. S obs. = riqueza observada; S est. = riqueza estimada.
Table 3. Richness and abundance of ants captured in both production systems in Luján de Cuyo, Mendoza, Argentina. S obs. = observed richness; S est. = estimated richness.
|
Sistema de producción |
S obs. |
S est. |
Abundance |
||
|
Total |
Parcial |
Jack 1 |
|||
|
Convencional |
17 |
verano |
11 |
12.43 |
1301 |
|
otoño |
10 |
9.42 |
351 |
||
|
invierno |
8 |
13.45 |
192 |
||
|
primavera |
12 |
11.45 |
1147 |
||
|
Orgánico |
17 |
verano |
11 |
11.96 |
5757 |
|
otoño |
13 |
8.52 |
1184 |
||
|
invierno |
9 |
11.98 |
273 |
||
|
primavera |
14 |
12.46 |
2770 |
||
La diversidad anual en los viñedos se evaluó mediante los índices de diversidad de Shannon (H) y Simpson (D), junto con medidas de uniformidad (J y E). Los resultados muestran una tendencia hacia una mayor diversidad y uniformidad en las comunidades de hormigas de los viñedos manejados bajo sistema orgánico (Tabla 4).
Tabla 4. Índices de diversidad (H y D) y medidas de uniformidad (J y E) de especies de hormigas en viñedos bajo sistemas de producción convencional y orgánica en Luján de Cuyo, Mendoza, Argentina.
Table 4. Diversity indices (H and D) and uniformity measures (J and E) of ant species in vineyards under conventional and organic production systems in Luján de Cuyo, Mendoza, Argentina.
|
Diversidad |
Equitatividad |
|||
|
H |
D |
J |
E |
|
|
Convencional de Drummond |
2.01 |
0.844 |
0.742 |
0.311 |
|
Convencional de Agrelo |
1.69 |
0.735 |
0.658 |
0.28 |
|
Orgánico de Drummond |
1.8 |
0.825 |
0.701 |
0.321 |
|
Orgánico de Agrelo |
2.12 |
0.857 |
0.782 |
0.316 |
H = Índice de Shannon-Weaver
D = Índice de Simpson
J = Índice de Pielou
E = Índice de Simpson-Evanness
En cuanto a los grupos funcionales, en ambos tipos de manejo, dos gremios resultaron dominantes en base a su abundancia, el de las mirmicinas generalistas (CCGM) y el de las especialistas en climas fríos oportunistas (CCSOp) (Tabla 5; Fig. 5).
Tabla 5. Grupos funcionales de hormigas de las parcelas con manejo convencional y orgánico de Luján de Cuyo, Mendoza, Argentina. Adaptado de Claver et al. (2014).
Table 5. Functional groups of ants from plots with conventional and organic management in Luján de Cuyo, Mendoza, Argentina. Adapted from Claver et al. (2014).
|
Grupo Funcional |
Taxa |
Características |
|
|
Camponotinis Subordinadas (SCa) |
Camponotus mus Camponotus punctulatus |
Comportamiento subordinado hacia otras especies dominantes. |
|
|
Especialistas en clima (CS) |
Caliente (HCS) |
Forelius chalybaeus |
Especies adaptadas a hábitats áridos. Con especializaciones comportamentales, fisiológicas y morfológicas que permiten reducir las interacciones con especies dominantes. |
|
Tropical (TCS) |
Amoimyrmex striatus Acromyrmex lobicornis |
Presentes en hábitats donde las especies dominantes no son abundantes. |
|
|
Frío y crípticas (CCSC) |
Solenopsis sp. 1 Solenopsis sp. 3 Solenopsis sp. 4 Brachymyrmex spp. Strumigenys rogeri |
Presentes en hábitats donde las Dolichoderinas Dominantes no son muy abundantes. De pequeño tamaño, se alimentan en el suelo. |
|
|
Frío y oportunistas (CCSOp) |
Dorymyrmex wolffhugeli Dorymyrmex flavescens |
No especializadas. Comunes en áreas disturbadas o áreas de baja diversidad. |
|
|
Mirmicinas generalistas (CCGM) |
Pheidole bergi Pheidole spininodis Pheidole aberrans Pheidole triconstricta Solenopsis sp. 2 |
Cosmopolitas. No muy activas ni agresivas. Reclutan y se mueven en masa para defender sus recursos. |
|
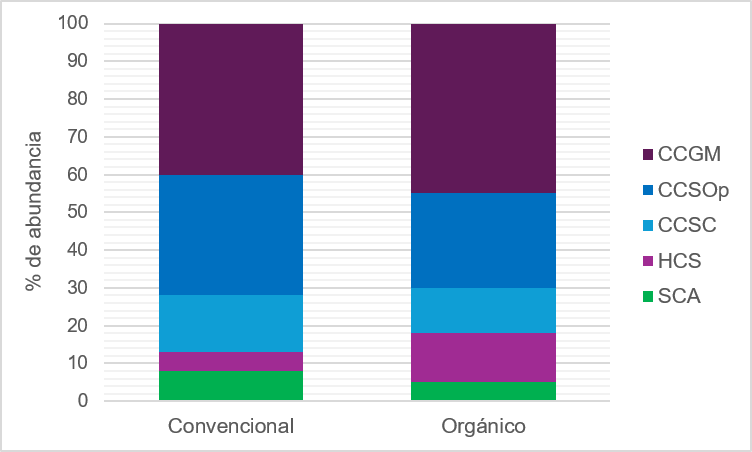
Figura 5. Porcentaje de abundancia de los grupos funcionales de especies de hormigas presentes en las parcelas con manejo convencional y orgánico de Luján de Cuyo, Mendoza, Argentina. CCGM = mirmicinas generalistas. CCSOp = especialistas en clima frío oportunistas. CCSC = especialistas en clima frío crípticas. HSC = especialistas en clima caliente. SCa = camponotinis subordinadas.
Figure 5. Percentage abundance of functional groups of ant species presents in plots with conventional and organic management in Luján de Cuyo, Mendoza, Argentina. CCGM = generalist myrmicines. CCSOp = opportunistic cold-climate specialists. CCSC = cryptic cold-climate specialists. HSC = hot-climate specialists. SCa = subordinate camponotinis.
Discusión
Este estudio evaluó los efectos de dos sistemas de producción vitícola (orgánico y convencional) sobre las comunidades de hormigas epígeas en viñedos del sur de Cuyo. Se registraron 19 especies pertenecientes a nueve géneros y cuatro subfamilias, siendo Myrmicinae la más representada y Pheidole el género dominante, en concordancia con estudios previos que destacan la importancia de este grupo en agroecosistemas (Hölldobler y Wilson, 1990; Lach et al., 2010).
Los resultados mostraron una abundancia total de hormigas aproximadamente tres veces mayor en los viñedos orgánicos, especialmente en aquellos que presentaban cobertura vegetal y corredores biológicos. Este patrón coincide con evidencias que indican que el manejo orgánico favorece sistemáticamente una mayor abundancia de hormigas que el manejo convencional (Schifani et al., 2026). La cobertura vegetal incrementa la complejidad estructural del hábitat, generando una mayor disponibilidad de microhábitats, sitios de nidificación y recursos alimenticios (Lassau y Hochuli, 2004), además de actuar como refugio frente a perturbaciones agrícolas y facilitar la recolonización de áreas protegidas (Giffard et al., 2022). Asimismo, aporta recursos tróficos al aumentar la disponibilidad de artrópodos presa y semillas para especies depredadoras y granívoras (Rocher et al., 2022; Schifani et al., 2026), mientras que los corredores biológicos y hábitats seminaturales favorecen la conectividad del paisaje, la dispersión de organismos beneficiosos y el flujo de biodiversidad hacia el interior de los viñedos (Nicholls et al., 2001). La vegetación también facilita el desplazamiento de hormigas depredadoras desde el suelo hacia la vid, potenciando el control biológico de plagas (Blaise et al., 2021).
En contraste, los viñedos convencionales presentaron menores niveles de abundancia, posiblemente asociados al uso de agroquímicos y a una menor complejidad estructural del sistema. El manejo agrícola puede modificar las comunidades de hormigas mediante el uso de fertilizantes, insecticidas y fungicidas, así como a través de cambios en la vegetación y perturbaciones del suelo (Masoni et al., 2017; Schifani et al., 2026). Estos factores pueden afectar directa o indirectamente a las comunidades de artrópodos, reduciendo la disponibilidad de presas y alterando las interacciones ecológicas (Geiger et al., 2010), mientras que la eliminación de la vegetación espontánea y el manejo intensivo del suelo simplifican el hábitat y reducen la abundancia de organismos asociados (Landis et al., 2000; Tscharntke et al., 2005). Sin embargo, debido al diseño observacional del estudio y al bajo nivel de replicación a escala de parcela, estas diferencias deben interpretarse con cautela y no como evidencia concluyente de causalidad.
A pesar de las diferencias observadas en abundancia, la riqueza, diversidad y composición de las comunidades fueron similares entre sistemas bajo esfuerzos de muestreo comparables. Esto sugiere que, en cultivos perennes como la vid, las comunidades de hormigas pueden presentar cierta resiliencia frente a distintos regímenes de manejo, posiblemente debido a la estabilidad temporal del sistema y a la persistencia de especies dominantes y generalistas que tienden a homogenizar la estructura comunitaria (Andersen, 1995; Perfecto y Vandermeer, 2008). Las diferencias de composición registradas entre sitios estuvieron asociadas principalmente a especies poco frecuentes o de distribución restringida, lo que destaca la importancia de factores locales, como las condiciones edáficas, microclimáticas y el uso del suelo, en la estructuración de estas comunidades (Bestelmeyer et al., 2006). En comparación con ambientes naturales cercanos, como la Reserva Ñacuñán, donde se ha registrado una mayor riqueza específica (Claver et al., 2014), los viñedos presentaron una diversidad relativamente menor, reflejando el efecto de la simplificación del paisaje sobre la biodiversidad.
La mayor abundancia registrada en los sistemas orgánicos podría tener implicancias relevantes para el funcionamiento ecológico de los viñedos. Las hormigas cumplen funciones esenciales en los agroecosistemas, incluyendo la depredación de plagas, la dispersión de semillas, la descomposición de materia orgánica y la modificación de las propiedades físicas y químicas del suelo (Folgarait, 1998; Del Toro et al., 2015). En particular, diversas especies actúan como agentes de control biológico al regular poblaciones de insectos fitófagos (Philpott y Armbrecht, 2006). No obstante, este efecto puede depender del contexto, ya que algunas hormigas pueden establecer asociaciones mutualistas con hemípteros productores de melaza, protegiéndolos de sus enemigos naturales y favoreciéndolos indirectamente. Por ello, las estrategias de manejo integrado de plagas deberían orientarse a promover comunidades dominadas por especies depredadoras y funcionalmente beneficiosas.
Las parcelas orgánicas también presentaron valores de uniformidad de composición de la comunidad ligeramente superiores, sugiriendo una distribución más equitativa de los individuos entre las especies y una menor dominancia de especies oportunistas. Este patrón es consistente con estudios que relacionan la complejidad estructural del hábitat con una mayor estabilidad ecológica (Altieri, 1999; Tilman et al., 2006), aunque en este caso debe considerarse como una tendencia observacional.
La variación estacional observada en la composición de las comunidades destaca la importancia de los factores climáticos en la dinámica de las hormigas epígeas. La diferenciación entre estaciones, particularmente entre verano e invierno, probablemente responde a cambios en la temperatura, la disponibilidad de recursos y los ciclos de actividad de las especies (Kaspari y Weiser, 2000). En regiones áridas y semiáridas la actividad de las hormigas se concentra durante los períodos cálidos y disminuye significativamente en invierno (Bestelmeyer et al., 2006), lo que indica que la estacionalidad define la ventana temporal durante la cual estas especies están presentes y pueden contribuir efectivamente a los servicios ecosistémicos de regulación dentro del viñedo.
Finalmente, en cuanto a los grupos funcionales, en ambos tipos de manejo predominaron las mirmicinas generalistas y las especialistas en clima frío oportunistas, representadas principalmente por los géneros Pheidole, Solenopsis y Dorymyrmex, este último característico de ambientes perturbados (Claver et al., 2014). Estos gremios también son dominantes en ambientes de Monte natural (Claver et al., 2014), lo que sugiere que constituyen componentes funcionales característicos de esta ecorregión, En contraste, no se registraron Ecitonini y las Attini estuvieron escasamente representadas. La ausencia de las primeras podría asociarse al disturbio agrícola y a que el Monte constituye el límite austral de su distribución, mientras que la baja abundancia de Attini difiere de lo observado en ambientes naturales (Claver et al., 2014) y coincide con registros de otros agroecosistemas, como los de Entre Ríos (Decuyper et al., 2017).
En conjunto, los resultados aportan evidencia descriptiva sobre la estructura y dinámica de las comunidades de hormigas en viñedos del sur de Cuyo y sugieren que prácticas de manejo menos intensivas, asociadas a una mayor cobertura vegetal y conectividad del paisaje, podrían favorecer su abundancia y los servicios ecosistémicos que ellas proveen. Dado que los estudios sobre hormigas epígeas en sistemas vitícolas de regiones áridas aún son escasos, este trabajo constituye una línea de base relevante para futuras investigaciones orientadas a evaluar de manera más robusta los efectos del manejo agrícola sobre la biodiversidad y los servicios ecosistémicos asociados.
Contribución de las autoras
Carla Dagatti: conceptualization, methodology, research, data curation, formal analysis, writing original draft, writing review and editing; Florencia Fernández Campón: methodology, data curation, writing review and editing; Silvia Claver: methodology, writing review and editing.
Disponibilidad de datos
Los datos empleados para este estudio se encuentran disponibles en https://doi.org/10.5281/zenodo.20798911
Financiación, permisos requeridos, potenciales conflictos de interés y agradecimientos
Las autoras de este artículo declaran no tener ningún conflicto de interés.
Agradecemos al Dr. Ernesto M. Uliarte por sus valiosos comentarios y sugerencias, que contribuyeron significativamente a mejorar la calidad del artículo. Asimismo, expresamos nuestro reconocimiento a todas las personas que colaboraron en la realización de los muestreos en los viñedos de la Bodega Navarro Correas y de la Estación Experimental Agropecuaria INTA Mendoza. Finalmente, agradecemos a Misael Pla por su colaboración en el procesamiento de las trampas, y a Gabriel Pisi y Florencia Ferrari por su ayuda en la edición del documento.
Referencias
Altieri, M. A. (1999). Agroecología. Bases científicas para una agricultura sustentable. Editorial Nordan-Comunidad. Montevideo. Uruguay.
Andersen, A. N. (1995). A classification of Australian ant communities. based on functional groups which parallel plant life-forms in relation to stress and disturbance. Journal of Biogeography, 22. 15-29. http://doi.org/10.2307/2846070
Aranda-Rickert, A., & Fracchia, S. (2012). Are subordinate ants the best seed dispersers? Linking dominance hierarchies and seed dispersal ability in myrmecochory interactions. Arthropod-Plant Interactions, 6(2). 297-306. https://doi.org/10.1007/s11829-011-9166-z
Banco Mundial. (2024). Arable land (% of land area) – Argentina. World Development Indicators. Available at: https://data.worldbank.org/indicator/AG.LND.ARBL.ZS?locations=AR
Blaise, C., Mazzia, C., Bischoff, A., Millon, A., Ponel, P., & Blight, O. (2021). The key role of inter-row vegetation and ants on predation in Mediterranean organic vineyards. Agriculture. Ecosystems & Environment, 311. 107327. https://doi.org/10.1016/j.agee.2021.107327
Becerra., V. (2001). Residuos de pesticidas en el cultivo de la vid. Revista de información sobre investigación y desarrollo agropecuario. IDIA XXI (1): 57-59.
Bestelmeyer, B. T., Ward, J. P., & Havstad, K. M. (2006). Soil‐geomorphic heterogeneity governs patchy vegetation dynamics at an arid ecotone. Ecology, 87(4). 963-973. https://doi.org/10.1890/0012-9658(2006)87%5b963:SHGPVD%5d2.0.CO;2
Birkhofer, K., Andersson, G. K., Bengtsson, J., Bommarco, R., Dänhardt, J., Ekbom, B., ... & Smith, H. G. (2018). Relationships between multiple biodiversity components and ecosystem services along a landscape complexity gradient. Biological Conservation, 218. 247-253. https://doi.org/10.1016/j.biocon.2017.12.027
Bolton, B. (1994). Identification guide to the ant genera of the world. Harvard University Press. Cambridge. Mass. USA. Available at: cabidigitallibrary.org
Claver, S., Silnik, S. L., & Campón, F. F. (2014). Response of ants to grazing disturbance at the central Monte Desert of Argentina: community descriptors and functional group scheme. Journal of Arid Land, 6(1). 117-127. https://doi.org/10.1007/s40333-013-0190-y
Colwell, R. (2013). EstimateS: statistical estimation of species richness and shared species from samples. University of Connecticut. Connecticut. USA.
Colwell, R. K., & Coddington, J. A. (1994). Estimating terrestrial biodiversity through extrapolation. Philosophical Transactions of the Royal Society of London. Series B: Biological Sciences, 345(1311). 101-118. https://royalsocietypublishing.org/
Cuezzo, F. (2000). Revisión del género Forelius (Hymenoptera: Formicidae: Dolichoderinae). Sociobiology, 35. 199-276.
Dagatti, C. V. (2016). Diversidad de hormigas (Hymenoptera: Formicidae) en el cultivo de la vid con manejo orgánico y tradicional en Mendoza. Tesis Doctoral. Universidad Nacional de Tucumán. Argentina.
Dagatti, C. V., & Vargas, G. A. (2021). Actividad forrajera y de mantenimiento de nido de la hormiga cortadora de hojas Acromyrmex lobicornis (Hymenoptera: Formicidae) en un viñedo orgánico inserto en el desierto de Monte en Mendoza. Argentina. Revista de la Sociedad Entomológica Argentina, 80(4). 120-128. https://doi.org/10.25085/rsea.800407
Decuyper., C. M., Ayala, F., Ermácora, O. E., Anglada, M. M., & Lindt, M. A. (2017). Atta vollenweideri (hymenoptera: formicidae) en un bosque nativo del centro norte de entre ríos. Natura Neotropicalis, 48(1/2). 45-56. Available at: academia.edu
Del Toro, I., Silva, R. R., & Ellison, A. M. (2015). Predicted impacts of climatic change on ant functional diversity and distributions in eastern North American forests. Diversity and Distributions, 21(7). 781-791. https://doi.org/10.1111/ddi.12331
Evans, T., Dawes, T., Ward, P., & Nathan, L. (2011). Ants and termites increase crop yield in a dry climate. Nature Comunications, 2. 262. https://doi.org/10.1038/ncomms1257
Flaherty, D. L., Jensen, F. L., Kasimatis, A. N., Kido, H., & Moller, W. J. (1981). Grape pest management. University of California. Agricultural Sciences Publications. USA. Available at: https://www.cabidigitallibrary.org/doi/full/10.5555/19820589934
Fernández, F. (2003). Introducción a las hormigas de la región Neotropical. Instituto de Investigación de Recursos Biológicos Alexander Von Humboldt. Bogotá. Colombia.
Folgarait, P. J. (1998). Ant biodiversity and its relationship to ecosystem functioning: a review. Biodiversity & Conservation, 7(9). 1221-1244. https://doi.org/10.1023/A:1008891901953
Gallardo, A. (1916). Notes systematiques et ethologiques sur les fourms Attines de la Republique Argentine. Annales del Museo de Historia Natural. Buenos Aires, 28. 317-344.
Geiger, F., Bengtsson, J., Berendse, F., Weisser, W. W., Emmerson, M., Morales, M. B., ... & Inchausti, P. (2010). Persistent negative effects of pesticides on biodiversity and biological control potential on European farmland. Basic and Applied Ecology. 11(2). 97-105. https://doi.org/10.1016/j.baae.2009.12.001
Giffard, B., Winter, S., Guidoni, S., Nicolai, A., Castaldini, M., Cluzeau. D., ... & Leyer, I. (2022). Vineyard management and its impacts on soil biodiversity. functions. and ecosystem services. Frontiers in Ecology and Evolution, 10. 850272. https://doi.org/10.3389/fevo.2022.850272
Global Yield Gap Atlas. 2023. Argentina crop production systems and statistics. Disponible en: https://www.yieldgap.org/argentina
Goncalves, C. (1961). O gênero Acromyrmex no Brasil (Hym. Formicidae). Studia Entomological, 4(1-4). 113-180.
Gotelli, N. J., & Colwell, R. K. (2001). Quantifying biodiversity: procedures and pitfalls in the measurement and comparison of species richness. Ecology Letters, 4(4). 379-391. https://doi.org/10.1046/j.1461-0248.2001.00230.x
Hölldobler, B., & Wilson, E. O. (1990). The ants. Harvard University Press.
Di Rienzo, J. A., Casanoves, F., Balzarini, M. G., González, L., Tablada, M., Robledo, C. W. (2020). Centro de Transferencia InfoStat. FCA. Universidad Nacional de Córdoba. Argentina. http://www.infostat.com.ar
Instituto Nacional de Vitivinicultura (INV) (2024). Informe anual de superficie vitícola argentina. Available at: https://www.argentina.gob.ar/noticias/anuario-superficie-2024
Karnish, A. (2024). Seed dispersal by ants: a primer. International Journal of Plant Sciences, 185(5). 403-411. https://doi.org/10.1086/730787
Kaspari, M., & Weiser, M. D. (2000). Ant activity along moisture gradients in a neotropical forest. Biotropica, 32(4). 703-711. https://doi.org/10.1111/j.1744-7429.2000.tb00518.x
Kusnezov, N. (1951). El género Pogonomyrmex Mayr. Acta Zoologica Lilloana, 9. 227-333.
Kusnezov, N. (1953). Lista de las hormigas de Tucumán con descripción de dos nuevos géneros (Hymenoptera: Formicidae). Acta Zoologica Lilloana, 13. 327-339.
Kusnezov, N. (1956). Claves para la identificación de las hormigas de la fauna argentina. Ministerio de Agricultura y Ganadería. Argentina.
Kusnezov, N. (1978). Hormigas argentinas. Clave para su identificación. Fundación Miguel Lillo. Ministerio de Cultura y Educación. Argentina.
Lach, L., Parr, C., & Abbott, K. (2010). Ant ecology. Oxford University Press.
Landis, D. A., Wratten, S. D., & Gurr, G. M. (2000). Habitat management to conserve natural enemies of arthropod pests in agriculture. Annual Review of Entomology. 45(1). 175-201. https://doi.org/10.1146/annurev.ento.45.1.175
Lassau, S. A., & Hochuli, D. F. (2004). Effects of habitat complexity on ant assemblages. Ecography, 27(2). 157-164. https://doi.org/10.1111/j.0906-7590.2004.03675.x
Magurran, A. E. (1988). Diversity indices and species abundance models. In: Ecological diversity and its measurement (pp. 7-45). Springer. Dordrecht. Netherlands.
Masoni, A., Frizzi, F., Brühl, C., Zocchi, N., Palchetti, E., Chelazzi, G., & Santini, G. (2017). Management matters: A comparison of ant assemblages in organic and conventional vineyards. Agriculture. Ecosystems & Environment, 246. 175-183. https://doi.org/10.1016/j.agee.2017.05.036
Matson, P. A., Parton, A. W., Power., A. G., & Swift, M. (1997). Agricultural intensification and ecosystem properties. Science, 277. 504-509. https://doi.org/10.1126/science.277.5325.504
Montoya-Lerma, J., Giraldo-Echeverri, C., Armbrecht, I., Farji-Brener, A. & Calle, Z. (2012) Leaf-cutting ants revisited: Towards rational management and control. International Journal of Pest Management, 58 (3). 225-247. https://doi.org/10.1080/09670874.2012.663946
Nicholls, C. I., Parrella, M., & Altieri, M. A. (2001). The effects of a vegetational corridor on the abundance and dispersal of insect biodiversity within a northern California organic vineyard. Landscape Ecology, 16(2). 133-146. https://doi.org/10.1023/A:1011128222867
Perfecto, I., & Vandermeer, J. (2008). Biodiversity conservation in tropical agroecosystems: a new conservation paradigm. Annals of the New York Academy of Sciences, 1134(1). 173-200. https://doi.org/10.1196/annals.1439.011Digital Object Identifier (DOI)
Prado, E. (1991). Artrópodos y sus enemigos naturales asociados a plantas cultivadas en Chile. Boletín técnico 169. Instituto de Investigaciones Agropecuarias INIA. Santiago de Chile. Chile.
Philpott, S. M., & Armbrecht, I. (2006). Biodiversity in tropical agroforests and the ecological role of ants and ant diversity in predatory function. Ecological Entomology, 31(4). 369-377. https://doi.org/10.1111/j.1365-2311.2006.00793.x
Ramírez-Suárez, W., López-Chouza, J., Flores-Acosta, M., Sánchez-Cárdenas, S., & Rodríguez-Morejón, P. (2024). La biodiversidad y los servicios ecosistémicos en sistemas agroecológicos. Una revisión. Pastos y Forrajes, 47. e02.
Rios-Casanova, L., Valiente-Banuet, A., & Rico-Gray, V. (2004). Las hormigas del valle de Tehuacan (Hymenoptera: Formicidae): una comparación con otras zonas áridas de México. Acta Zoologica Mexicana, 20 (1). 37-54.
Rocher, L., Blaya. R., Blaise, C., Bischoff, A., & Blight, O. (2022). Species and functional responses of ants to inter-row tillage and vegetation in organic mediterranean vineyards. Basic and Applied Ecology, 65. 126-135. https://doi.org/10.1016/j.baae.2022.11.009
Sarandón, S. J., & Flores, C. C. (2014). Agroecología: bases teóricas para el diseño y manejo de agroecosistemas sustentables. Editorial de la Universidad de La Plata. La Plata. Argentina.
Schifani, E., Geppert, C., Giannetti, D., Anfora, G., Burgio, G., Chiesa, S. G., … & Grasso, D. A. (2026). Organic management. reduced tillage. and increased vegetation cover promote ant abundance and diversity in Mediterranean Vineyards. Journal of Insect Conservation, 30(1). 15. https://doi.org/10.1007/s10841-026-00747-2
Stupino, S. A., Frangi, J. L., Sarandón., S. J., Arturi, M. F., & Ferreira, A. C. (2008). Plant diversity in two farms under organic and conventional management in La Plata. Argentina. A case study. Revista Brasilera de Agroecología. 3 (3). 24-35. https://sedici.unlp.edu.ar/handle/10915/69113
Swift, M. J., Izac, A., & Van Noordwijk, M. (2004). Biodiversity and ecosystem services in agricultural landscapes. Are we asking the right questions? Agriculture. Ecosystems & Environment, 104. 113-134. https://doi.org/10.1016/j.agee.2004.01.013
Tilman, D., Reich, P. B., & Knops, J. M. (2006). Biodiversity and ecosystem stability in a decade-long grassland experiment. Nature, 441(7093). 629-632. https://doi.org/10.1038/nature04742
Thomson., L. J., & Hoffmann, A. A. (2009). Vegetation increases the abundance of natural enemies in vineyards. Biological Control, 49(3). 259-269. https://doi.org/10.1016/j.biocontrol.2009.01.009
Tscharntke, T., Klein, A. M., Kruess, A., Steffan‐Dewenter, I., & Thies, C. (2005). Landscape perspectives on agricultural intensification and biodiversity–ecosystem service management. Ecology Letters, 8(8). 857-874. https://doi.org/10.1111/j.1461-0248.2005.00782.x
Uliarte, M. E., Ferrari, F. N., Martinez, L., Dagatti, C. V., Ambrogetti, A., & Montoya, M. (2018). Viticultura sustentable en los valles irrigados de Mendoza: evaluación de prácticas agroecológicas para incrementar la resiliencia de agro-ecosistemas frágiles. En: Ullé y Diaz (eds.). El suelo como reactor de los procesos de regulación funcional de los agroecosistemas. Ediciones INTA. Argentina.