ecosistemas
ISSN 1697-2473
Open access / CC BY-NC 4.0
© 2026 Los autores [ECOSISTEMAS no se hace responsable del uso indebido de material sujeto a derecho de autor] / © 2026 The authors [ECOSISTEMAS is not responsible for the misuse of copyrighted material]
Ecosistemas 35(2): 3164 [mayo - agosto / May - August, 2026]: https://doi.org/10.7818/ECOS.3164
Editor asociado / Associate editor: Julen Astigarraga
ARTÍCULO DE INVESTIGACIÓN / RESEARCH ARTICLE
Modelamiento de distribución potencial de Amburana cearensis en Madre de Dios, Perú: evidencia de restricción de hábitat en una especie “En Peligro”
Henry Francisco
Soria-Díaz1,*  , Ruth Fany Ferrel-Quispe2 , Mauro
Vela Da-Fonseca2 , Roger Chambi-Legoas2 , Simith
Del Carmen Díaz-Salas3 , Benjamín Soria-Solano4 , Arturo Tomás Macedo-Ramírez4 , Jairo Edson Gutiérrez-Collao1 , Janette Danizza Jauregui-Ofracio1
(1) Departamento Académico de Ingeniería Forestal y Ambiental. Universidad Nacional Autónoma de Tayacaja Daniel Hernández Morillo. Huancavelica, Perú.
(2) Departamento Académico de Ingeniería Forestal y Medio Ambiente. Universidad Nacional Amazónica de Madre de Dios. Madre de Dios, Perú.
(3) Facultad de Ciencias Biológicas. Universidad Nacional de la Amazonía Peruana. Loreto, Perú.
(4) Facultad de Ciencias Forestales. Universidad Nacional de la Amazonía Peruana. Loreto, Perú.
* Autor de correspondencia / Corresponding author: Henry Francisco Soria-Díaz [henrysoria@unat.edu.pe]
|
> Recibido / Received: 12/12/2025 – Aceptado / Accepted: 05/05/2026 |
Cómo citar / How to cite: Soria-Díaz, H. F., Ferrel-Quispe, R. F., Vela Da-Fonseca, M., Chambi-Legoas, R., Díaz-Salas, S. D. C., Soria-Solano, B., … Jauregui-Ofracio, J. D. (2026). Modelamiento de distribución potencial de Amburana cearensis en Madre de Dios, Perú: evidencia de restricción de hábitat en una especie “En Peligro”. Ecosistemas 35(2): 3164. https://doi.org/10.7818/ECOS.3164
|
Modelamiento de distribución potencial de Amburana cearensis en Madre de Dios, Perú: evidencia de restricción de hábitat en una especie “En Peligro” Resumen: Amburana cearensis es una especie forestal que se encuentra “En Peligro” según la Lista Roja de la Unión Internacional para la Conservación de la Naturaleza, por lo que es necesario identificar aquellas áreas potenciales de distribución espacial de esta especie dentro de la Amazonía. En ese contexto, el objetivo del presente estudio fue modelar la distribución potencial de Amburana cearensis en Madre de Dios, Perú. Se empleó la metodología de modelos de distribución de especies utilizando el software MaxEnt. Según los resultados obtenidos, las variables de "isotermalidad", "temperatura media anual" y el "contenido de carbono orgánico del suelo" fueron los predictores más importantes de la distribución de la especie. Se identificaron cuatro categorías de distribución potencial, donde los hábitats de idoneidad “muy alto” y “alto” representaron el 18.80 % y 15.56 % de la distribución actual de la especie. En conclusión, menos del 35 % de la superficie de la región presenta condiciones óptimas para la especie y, además, está bajo presión por actividades antrópicas como la agricultura y ganadería, lo que provoca que las áreas de distribución potencial de Amburana cearensis estén amenazadas y restringidas en el área de estudio. Palabras clave: biodiversidad; conservación; Ishpingo; MaxEnt; nicho ecológico; variables ambientales Potential distribution modeling of Amburana cearensis in Madre de Dios, Peru: evidence of habitat restriction in an “Endangered” species Abstract: Amburana cearensis is a tree species classified as "Endangered" on the International Union for Conservation of Nature Red List, making it necessary to identify potential areas of spatial distribution of this species within the Amazon. In this context, the present study aimed to model the potential distribution of Amburana cearensis in Madre de Dios, Peru. The species distribution modeling methodology was employed using MaxEnt software. According to the results obtained, the variables of "isothermality," "mean annual temperature," and "soil organic carbon content" were the most important predictors of the species' distribution. Four categories of potential distribution were identified, among which habitats of “very high” and “high” suitability accounted for 18.80% and 15.56% of the species' current distribution. In conclusion, less than 35% of the region’s land area offers optimal conditions for the species; furthermore, it is under pressure from anthropogenic activities such as agriculture and livestock farming, which means that the potential distribution areas of Amburana cearensis are threatened and restricted within the study area. Keywords: biodiversity; conservation; Ishpingo; MaxEnt; ecological niche; environmental variables |
Introducción
Amburana cearensis es una especie forestal neotropical que se distribuye biogeográficamente en los países de Brasil, Paraguay, Bolivia, Argentina y Perú (Leite, 2005; Barstow, 2024) (Fig. A1 del Anexo), considerándose una especie esciófita de crecimiento lento (López et al., 2022) que se caracteriza por presentar una floración y fructificación en los períodos de estación seca, es decir, entre los meses de julio y agosto (Almeida et al., 2017). Sumado a ello, posee una madera de excelente calidad empleada en la carpintería y fabricación de muebles finos (Lisboa et al., 2016), lo que intensifica la presión antrópica sobre sus poblaciones por medio de la tala selectiva y la extracción ilegal, lo cual hace que se reduzcan aún más los hábitats de idoneidad de la especie en su área de distribución.
Los bosques tropicales de América del Sur albergan el hábitat de la A. cearensis que está siendo amenazado por la tala selectiva y la expansión de la agricultura y la ganadería intensiva, reduciendo su población y limitando su distribución en las últimas décadas (López et al., 2022). En la Amazonía sureste peruana, específicamente en Madre de Dios, A. cearensis es una de las especies forestales de gran demanda comercial en la industria forestal peruana, lo que incentiva su tala selectiva y extracción no regulada de sus poblaciones (Pulido, 2021; Soria-Díaz et al., 2024b). A ello se suman las actividades antrópicas como la agricultura y ganadería que representan una amenaza al promover deforestación y pérdida de hábitat disponible para la especie en la región (Alarcon-Aguirre et al., 2021). Asimismo, la reducción de cobertura forestal desempeña un papel negativo en la distribución espacial de la especie (Franco et al., 2025; Teixeira et al., 2025), en la regeneración natural (Mathur et al., 2023; Mathur & Mathur, 2024) y en la reducción de servicios ecosistémicos brindados por los bosques (Bachi et al., 2020; Soria-Díaz et al., 2024a).
Además, no existen estudios o registros oficiales de distribución potencial de A. cearensis en Perú, Brasil y Bolivia, por lo que se desconocen las áreas de “alta probabilidad de ocurrencia” y las variables ambientales que influyen en la biogeografía y desarrollo potencial de esta especie forestal dentro de los bosques tropicales. Sumado a ello, el estado de conservación de esta especie está clasificado como “En Peligro” según la Lista Roja de la Unión Internacional para la Conservación de la Naturaleza (Oliveira et al., 2019; Brandes et al., 2020; Barstow, 2024).
En ese contexto, los modelos de distribución de especies (SDM en inglés) ayudan a cubrir estos vacíos de información teniendo como base los datos de presencia de la especie y las variables ambientales. El software MaxEnt genera predicciones de áreas de distribución potencial a partir del modelamiento del nicho ecológico (Soberón & Peterson, 2005; Merow et al., 2013). Estos modelos son una herramienta útil para la conservación de la biodiversidad, permitiendo tomar decisiones ya que pueden contribuir en el establecimiento de corredores ecológicos o áreas protegidas para proteger y mantener las especies de flora y fauna en el tiempo (Aguilar et al., 2015; Abdelaal et al., 2019). Por ejemplo, diversos estudios predijeron e identificaron áreas de distribución potencial de especies forestales con MaxEnt en regiones tropicales de Sudamérica, como Myrceugenia spp. (Augustin et al., 2025), Dipteryx spp. (Cárdenas et al., 2023), Cinchona spp. (García et al., 2022), Theobroma cacao (Plasencia-Vázquez et al., 2022) y Cedrela odorata (Laurente, 2015).
El modelamiento de distribución potencial de A. cearensis en Madre de Dios se presenta como una herramienta fundamental para identificar y cuantificar las áreas críticas donde esta especie forestal puede desarrollarse dentro del área de estudio. La aplicación de estas técnicas contribuye significativamente a comprender las variables ambientales que condicionan su distribución y, en consecuencia, a generar conocimiento clave para promover su sostenibilidad a futuro (Vieira et al., 2018).
El objetivo del estudio fue modelar la distribución potencial de A. cearensis en Madre de Dios, Perú. Los resultados obtenidos contribuyen al campo de la ecología forestal al identificar las variables ambientales que predicen su distribución potencial en la región. De esa manera, los mapas de modelos de distribución de especies pueden orientar el diseño de estrategias de conservación, como la generación de corredores ecológicos, el establecimiento de áreas protegidas o la recuperación de sus poblaciones en el área de estudio.
Material y métodos
Área de estudio
El área de estudio tiene una superficie aproximada de 85 183.96 km2 y está localizada en la Amazonía sureste del Perú, en el departamento de Madre de Dios (Fig. 1). Esta región posee una densa cobertura forestal que se distribuye espacialmente en rangos altitudinales de 150 a 3900 metros sobre el nivel del mar. El 44.5 % de su territorio alberga seis áreas protegidas (Reserva Comunal Amarakaeri, Reserva Comunal Purús, Parque Nacional del Manu, Parque Nacional Bahuaja-Sonene, Parque Nacional Alto Purús y la Reserva Nacional Tambopata). Presenta un clima tropical húmedo, con 26 °C de temperatura promedio mensual y precipitaciones anuales que exceden los 1000 mm (Portal-Cahuana et al., 2023), además de ser considerado uno de los “hotspots” de mayor biodiversidad del Perú (Tarazona y Miyasiro-López, 2020; Barocas et al., 2023).
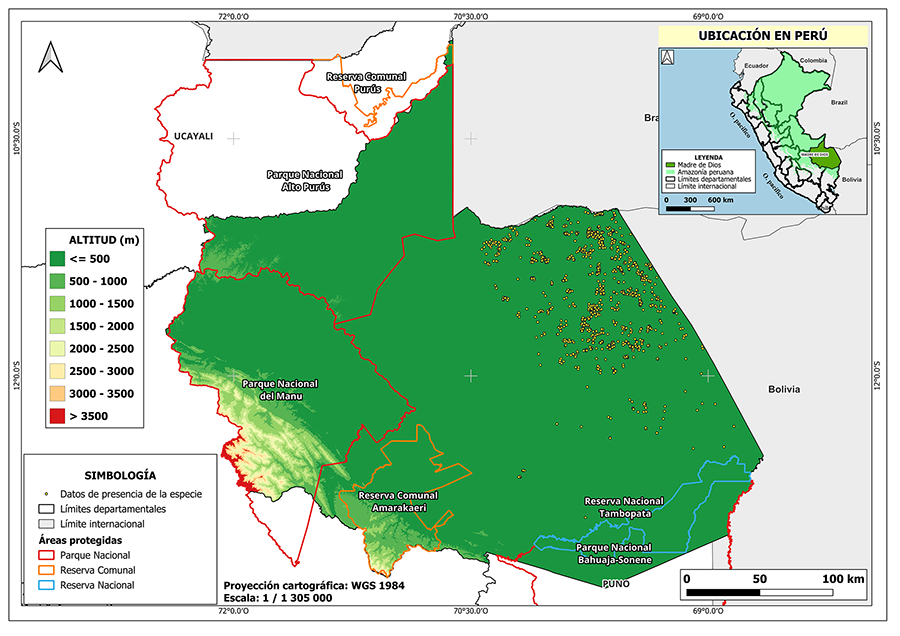
Figura 1. Localización del área de estudio en la Amazonía sureste peruana (Madre de Dios). Se observa que aproximadamente el 85 % de la extensión de la región abarca rangos altitudinales menores a 550 metros sobre el nivel del mar.
Figure 1. Location of the study area in the southeastern Peruvian Amazon (Madre de Dios). It is observed that approximately 85% of the region's extent encompasses altitudinal ranges below 550 meters above sea level.
Proceso metodológico
El estudio empleó la metodología de modelos de distribución de especies utilizando el software MaxEnt (Soberón y Peterson, 2005; Merow et al., 2013; Duan et al., 2025), que utiliza el principio matemático de “máxima entropía” para predecir las áreas de “alta probabilidad de ocurrencia” de una especie dentro de un área geográfica, mediante el análisis conjunto de sus datos de presencia y la influencia de variables ambientales clave (Elith et al., 2011). Bajo este escenario, la finalidad del estudio fue modelar la distribución potencial de A. cearensis en Madre de Dios para identificar las áreas de “alta probabilidad de ocurrencia” donde esta especie forestal se desarrolla potencialmente en la región. En la Figura 2 se muestra el proceso metodológico desarrollado.
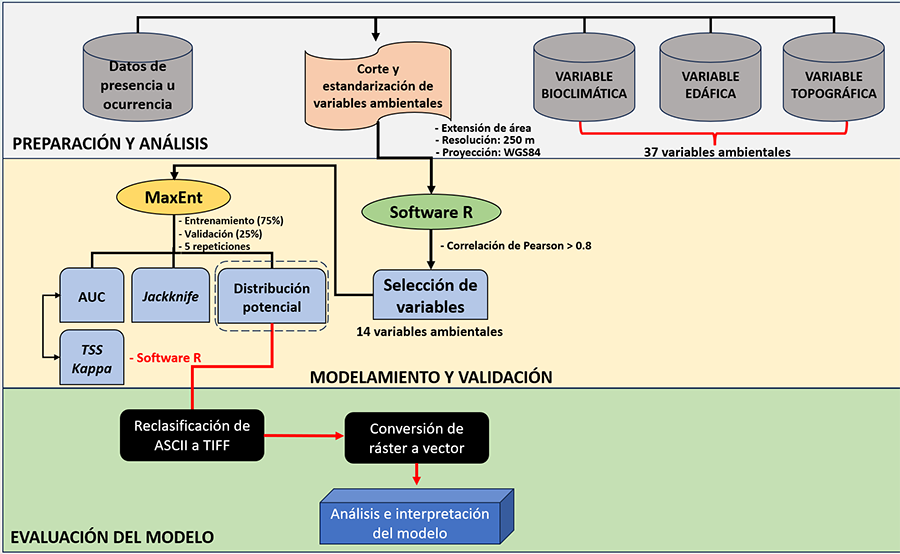
Figura 2. Proceso metodológico empleado en el estudio. Obsérvese que el proceso realizado abarcó tres etapas (preparación y análisis; modelamiento y validación; evaluación del modelo).
Figure 2. Methodological process employed in the study. Note that the process carried out comprised three stages (preparation and analysis; modeling and validation; model evaluation).
Tamaño de la muestra
La muestra estuvo conformada por 1225 individuos de la especie A. cearensis, siendo específicamente 1222 datos de presencia del “Organismo de Supervisión de los Recursos Forestales y de Fauna Silvestre” (OSINFOR, 2024) y 3 del “Sistema Global de Información sobre Biodiversidad” (GBIF, 2023). No obstante, se realizó una limpieza de los datos de presencia de A. cearensis con relación al tamaño de píxel de las variables ambientales uniformizadas a una resolución espacial de 250 m, con el fin de verificar información duplicada en cada uno de los píxeles de la región. En ese sentido, se encontraron setenta y cuatro (74) datos de presencia duplicados de A. cearensis, dando como resultado un filtro de 1151 individuos utilizando los paquetes “sp” y “sf” en R bajo la interfaz de JupyterLab con la versión de Python 3.10 (Python Software Foundation, 2021; R Core Team, 2024; Project Jupyter, 2025).
Variables ambientales
Se descargaron datos climáticos y bioclimáticos históricos de la plataforma “WorldClim 2.1” del período 1970-2000 que se lanzaron y actualizaron el 2020, siendo archivos en formato ráster con resolución espacial de 1 km (Tabla 1). Las variables climáticas representan los datos mensuales que describen las condiciones climáticas generales de la serie histórica (1970-2000), mientras que las variables bioclimáticas son “promedios calculados” a partir de las variables climáticas mensuales, mostrando tendencias, estacionalidad y factores limitantes que influyen en la fisiología y distribución de los seres vivos (Fick y Hijmans, 2017). En el caso de las variables climáticas, el modelo incluyó 12 capas ráster de precipitación, 12 de temperatura mínima, 12 de temperatura máxima y 12 de temperatura media.
Por otro lado, mediante la plataforma “SoilGrids” se descargaron datos edáficos con 250 m de resolución espacial (Poggio et al., 2021). De la misma manera, se descargaron de la plataforma “SRTM” (Shuttle Radar Topography Mission) datos topográficos como los modelos digitales de elevación (MDE) con resolución espacial de 90 m (O’Loughlin et al., 2016; Grohmann, 2018). También, a partir de los MDE se derivaron los ráster de pendiente del terreno, aspecto, el índice de rugosidad de elevación (TRI en inglés), el índice de posición topográfica (TPI en inglés) y la dirección del flujo de agua (Tabla 1).
Tanto los datos de presencia de la especie como las variables ambientales fueron recortados para el área de estudio usando los paquetes “sp” y “raster” en R bajo la interfaz de JupyterLab versión 4.2.2 (R Core Team, 2024; Project Jupyter, 2025). Además, se procedió a estandarizar dicha información a una resolución espacial de 250 m, respetando el número de filas y columnas en formato ráster. En ese sentido, para mantener el mismo tamaño de píxel y buen nivel de detalle, se decidió remuestrear todas las capas ráster a 250 m, al tratarse de una resolución espacial intermedia entre las capas originales y para evitar la pérdida de información de las capas edáficas (Keil et al., 2013; Kling et al., 2024).
En relación con la proyección cartográfica, se trabajó en el sistema de coordenadas geográficas WGS 1984. Posteriormente, se convirtieron los archivos ráster de GeoTiff (*.TIF) a formato ASCII (*.asc), formato de archivo nativo de entrada del software MaxEnt (Phillips et al., 2025). Finalmente, de acuerdo con la Tabla 1, se consideraron inicialmente en el modelo 19 variables bioclimáticas, 4 variables climáticas, 8 variables edáficas y 6 variables topográficas. Sin embargo, antes de la etapa de entrenamiento y validación en MaxEnt, se realizó un filtro de las 37 variables ambientales utilizando la correlación de Pearson (>0.8) mediante los paquetes “corrplot” y “usdm” en R (R Core Team, 2024), con la finalidad de reducir la multicolinealidad y evitar el sobreajuste del modelo (Graham, 2003; Farrell et al., 2019). El filtro total de variables que no presentaron una correlación de Pearson > 0.8 fue de 14 variables ambientales (Fig. A2 del Anexo), el cual han sido considerados para la etapa de entrenamiento y validación del modelo en MaxEnt.
Tabla 1. Lista de variables ambientales consideradas en el modelamiento de distribución potencial de Amburana cearensis. (*) Variables seleccionadas según la “correlación de Pearson” y utilizadas en el modelamiento; CV: Coeficiente de variación.
Table 1. List of environmental variables considered in the modeling of the potential distribution of Amburana cearensis. (*) Variables were selected based on “Pearson correlation” and used in the final model; CV: Coefficient of variation.
|
N° |
Código |
Variables ambientales |
Fuente |
Unidad |
|
1 |
Bio01(*) |
“Temperatura media anual” |
WorldClim |
°C |
|
2 |
Bio02 |
“Intervalo medio diurno” |
WorldClim |
°C |
|
3 |
Bio03(*) |
“Isotermalidad” (BIO2/BIO7) (×100) |
WorldClim |
- |
|
4 |
Bio04 |
“Estacionalidad de la temperatura (desviación estándar ×100)” |
WorldClim |
CV |
|
5 |
Bio05 |
“Temperatura máxima del mes más cálido” |
WorldClim |
°C |
|
6 |
Bio06 |
“Temperatura mínima del mes más frío” |
WorldClim |
°C |
|
7 |
Bio07 |
“Rango anual de temperatura” (BIO5-BIO6) |
WorldClim |
°C |
|
8 |
Bio08 |
“Temperatura media del trimestre más húmedo” |
WorldClim |
°C |
|
9 |
Bio09 |
“Temperatura media del trimestre más seco” |
WorldClim |
°C |
|
10 |
Bio10 |
“Temperatura media del trimestre más cálido” |
WorldClim |
°C |
|
11 |
Bio11 |
“Temperatura media del trimestre más frío” |
WorldClim |
°C |
|
12 |
Bio12(*) |
“Precipitación Anual” |
WorldClim |
mm |
|
13 |
Bio13 |
“Precipitación del mes más lluvioso” |
WorldClim |
mm |
|
14 |
Bio14 |
“Precipitación del mes más seco” |
WorldClim |
mm |
|
15 |
Bio15(*) |
“Estacionalidad de la Precipitación” (Coeficiente de Variación) |
WorldClim |
CV |
|
16 |
Bio16 |
“Precipitación del trimestre más húmedo” |
WorldClim |
mm |
|
17 |
Bio17 |
“Precipitación del Trimestre Más Seco” |
WorldClim |
mm |
|
18 |
Bio18 |
“Precipitación del trimestre más cálido” |
WorldClim |
mm |
|
19 |
Bio19 |
“Precipitación del trimestre más frío” |
WorldClim |
mm |
|
20 |
Temp_Max |
“Temperatura máxima del período” |
WorldClim |
°C |
|
21 |
Temp_Min |
“Temperatura mínima del período” |
WorldClim |
°C |
|
22 |
Temp_Mean |
“Temperatura media del período” |
WorldClim |
°C |
|
23 |
Prec |
“Precipitación del período” |
WorldClim |
mm |
|
24 |
Bdod(*) |
“Densidad aparente de la fracción tierra fina” |
SoilGrids |
cg cm-³ |
|
25 |
Clay(*) |
“Proporción de partículas de arcilla (< 0,002 mm) en la fracción tierra fina” |
SoilGrids |
g kg-1 |
|
26 |
Sand(*) |
“Proporción de partículas de arena (> 0,05 mm) en la fracción tierra fina” |
SoilGrids |
g kg-1 |
|
27 |
Silt(*) |
“Proporción de partículas de limo (≥ 0,002 mm y ≤ 0,05 mm) en tierra fina” |
SoilGrids |
g kg-1 |
|
28 |
Nitrogen(*) |
“Nitrógeno total (N)” |
SoilGrids |
cg kg-1 |
|
29 |
pH |
“pH del suelo” |
SoilGrids |
pHx10 |
|
30 |
Soc(*) |
“Contenido de carbono orgánico del suelo en la fracción tierra fina” |
SoilGrids |
dg kg-1 |
|
31 |
Ocs |
“Reservas de carbono orgánico” |
SoilGrids |
t ha-1 |
|
32 |
MDE |
“Altitud” |
SRTM |
m |
|
33 |
Slope(*) |
“Pendiente” |
SRTM |
grados (°) |
|
34 |
Aspect(*) |
“Aspecto” |
SRTM |
grados (°) |
|
35 |
TPI(*) |
“Índice topográfica del terreno” |
SRTM |
- |
|
36 |
TRI |
“Índice de rugosidad del terreno” |
SRTM |
- |
|
37 |
FlowDir(*) |
“Dirección de flujo del agua” |
SRTM |
- |
Entrenamiento y validación del modelo en MaxEnt
Se empleó la metodología de modelos de distribución de especies para identificar y cuantificar las áreas críticas de distribución potencial de A. cearensis en Madre de Dios, Perú. Bajo esa perspectiva, se utilizó MaxEnt 3.4.4, un software sumamente empleado para el modelamiento de distribución potencial en trabajos académicos y de investigación relacionados a estudios de la biodiversidad (Hou et al., 2025; Mahmoud et al., 2025). El software MaxEnt utiliza el principio de “máxima entropía” para estimar la distribución potencial de una especie a partir de datos de presencia y variables ambientales dentro de un área geográfica (Merow et al., 2013).
En MaxEnt, se utilizó el 75 % de los datos de presencia para entrenamiento y el 25 % para la validación del modelo (Cárdenas et al., 2023). En ese sentido, se ejecutó el modelo en el software MaxEnt 3.4.4 utilizando el formato de salida 'cloglog' (complementary log-log en inglés), formato por defecto en la versión actualizada de MaxEnt 3.4.4 (Phillips et al., 2025). El formato 'cloglog' transforma la salida cruda del modelo a una escala de 0 a 1, brindando una estimación de la probabilidad de presencia de la especie basada en supuestos más realistas sobre el esfuerzo de muestreo que el formato logístico tradicional (Merow et al., 2013; Phillips et al., 2017).
Para optimizar y reducir el riesgo de ‘sobreajuste’ del modelo, se evaluaron diferentes valores de multiplicador de regularización en MaxEnt (regularization multiplier en inglés) en un rango de 1 a 100 con incrementos de 0.5 de acuerdo con recomendaciones de estudios realizados (Radosavljevic y Anderson, 2014). En MaxEnt, 82 fue el valor óptimo durante la calibración del modelo, valor obtenido al dividir el número total de registros de presencia (1151) entre el número de variables ambientales seleccionadas (14), con el propósito de maximizar el área bajo la curva (AUC) de la validación y minimizar la complejidad paramétrica del modelo. Además, la decisión metodológica se basó en pruebas exploratorias que indicaron que valores más bajos del multiplicador producían un “sobreajuste” del modelo, mientras que valores más altos generaban modelos adecuadamente simplificados, equilibrados y robustos en la región.
Asimismo, se ejecutaron cinco repeticiones utilizando el método “Subsample”, un proceso que consiste en dividir aleatoriamente el conjunto de datos de presencia en dos etapas: un porcentaje de los datos se destina para entrenar el modelo (siendo el 75 % en este caso) y el porcentaje restante se reserva para comprobar la precisión predictiva del modelo (Phillips, 2017; Phillips et al., 2017). De acuerdo con las recomendaciones de Morales et al. (2017), se realizaron modificaciones en los ajustes por defecto en MaxEnt, como el multiplicador de regularización, la semilla aleatoria y el tipo de ejecución replicada, sin embargo, las clases de “features” (lineal, cuadrática, producto, bisagra y umbral) fueron seleccionadas de forma automática por el algoritmo en función del número de muestras de entrenamiento disponibles (Phillips et al., 2006). Por lo tanto, este proceso ayuda a establecer el nivel óptimo de repeticiones y el porcentaje de ocurrencias de entrenamiento retenidas para evaluar el grado de sensibilidad del modelo, así como verificar la estabilidad del modelo ante variaciones en la muestra de entrenamiento (Phillips, 2017; Cotrina-Sánchez et al., 2021).
Sumado a ello, se seleccionó la prueba de “Jackknife”, una técnica estadística incorporada en MaxEnt para evaluar la importancia de las variables ambientales en el modelo de distribución de especies (Phillips et al., 2006; Soberón y Nakamura, 2009; Shcheglovitova y Anderson, 2013). En esta etapa, se aplicó la prueba de “Jackknife” para comprobar las variables ambientales que más peso ecológico tuvieron en la distribución potencial de A. cearensis en el área de estudio. En ese contexto, las variables ambientales más importantes fueron determinados dentro del área bajo la curva (AUC) según el ROC (Relative Operating Characteristic en inglés) en MaxEnt. Ese método representa la tasa de píxeles de verdaderos positivos (sensibilidad) y los falsos positivos (especificidad) para un sistema de valores mediante una clasificación binaria incremental (Mas et al., 2013), produciendo una curva en la que valores más cercanos a 1 indican una mayor capacidad discriminativa del modelo (Pontius y Parmentier, 2014). Se clasificaron los valores de “AUC” en 5 niveles según el criterio de Cárdenas et al. (2023): excelente (>0.9), bueno (0.8-0.9), aceptable (0.7-0.8), deficiente (0.6-0.7) e ineficaz (< 0.6).
Adicionalmente, se determinaron en el software R algunas métricas complementarias de validación del modelo como el TSS (True Skill Statistic) y el índice de Kappa, con la finalidad de obtener una evaluación más robusta del desempeño predictivo del modelo. El TSS evalúa la capacidad del modelo para discriminar correctamente entre presencias y ausencias, combinando la sensibilidad y la especificidad en una única métrica (Abrego y Ovaskainen, 2023; Wu et al., 2025). El índice de Kappa evalúa la concordancia entre las predicciones del modelo y las observaciones, ajustando por el acuerdo esperado por azar. Ambas métricas alcanzaron un valor de 0.58, lo que indica un nivel moderado de desempeño del modelo. En general, valores más cercanos a 1 reflejan una mayor concordancia entre los valores predichos y observados (Allouche et al., 2006). Los resultados de estas métricas pueden ser consultados en la Figura A3 del Anexo.
Modelamiento de distribución potencial de Amburana cearensis
Se reclasificó usando el paquete “raster” en R bajo la interfaz de JupyterLab la distribución potencial de la especie en 4 categorías: “Muy alto” (>0.6), “alto” (0.6-0.4), “medio” (0.2-0.4) y “bajo” (<0.2), de acuerdo con los criterios sugeridos por Cárdenas et al. (2023). Terminado de reclasificar el ráster de distribución potencial de Amburana cearensis, se exportó el archivo de salida de formato ASCII a GeoTiff con resolución espacial de 250 m y reproyectado al sistema de coordenadas WGS84 UTM 19 Sur por medio del software QGIS 3.40 (QGIS Development Team, 2025). De la misma manera, utilizando el software QGIS 3.40, se elaboró la cartografía de distribución potencial de Amburana cearensis según el área de estudio para su posterior análisis e interpretación espacial.
Resultados
Análisis de las variables ambientales que más contribuyeron en el modelo
En la Figura 3 se muestran las tres variables ambientales que más contribuyeron en el modelo de A. cearensis según la prueba de “Jackknife” en MaxEnt, donde se observa que la variable bioclimática “Isotermalidad” (Bio03) presentó mayor peso ecológico en la distribución potencial de la especie seguido de las variables de “Temperatura media anual” (Bio01) y el “Contenido de carbono orgánico del suelo en la fracción de tierra fina” (Soc).
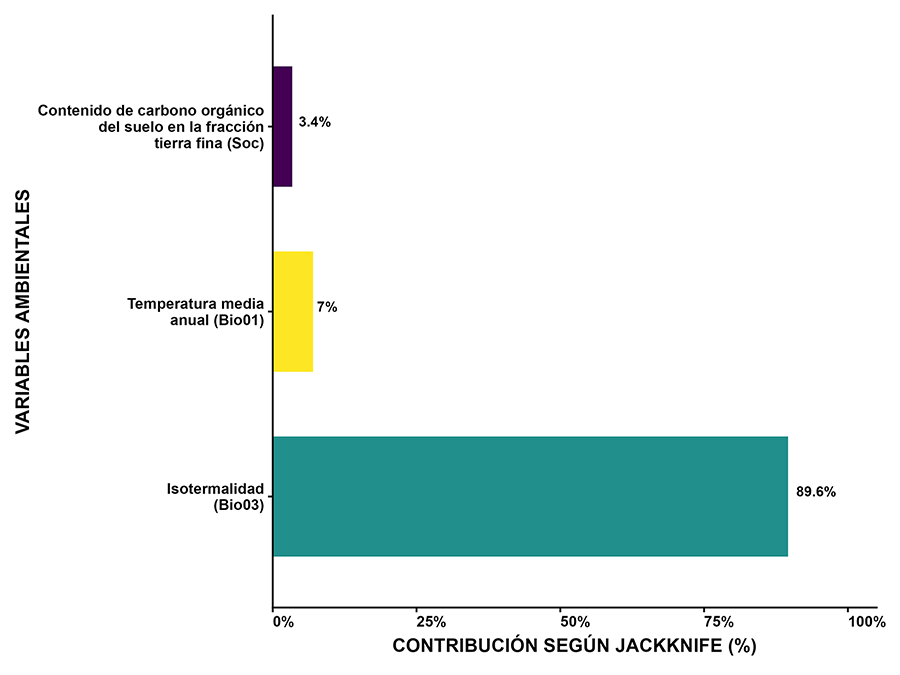
Figura 3. Contribución de las variables ambientales según la prueba de Jackknife. En MaxEnt se verificó que, de 14 variables ambientales, solo tres fueron los que más peso ecológico tuvieron en el modelo.
Figure 3. Contribution of environmental variables based on the Jackknife test. In MaxEnt, it was verified that out of 14 environmental variables, only three had the greatest ecological weight in the model.
Modelamiento de distribución potencial de Amburana cearensis
Los valores “AUC” según el ROC representan el proceso de validación de distribución potencial de A. cearensis producidos en MaxEnt. En ese sentido, se generaron cinco repeticiones en el modelamiento de distribución potencial con valores “AUC” de 0.9126 (A), 0.9057 (B), 0.9133 (C), 0.9098 (D) y 0.8978 (E), casi todas con valores ≥ 0.9, eligiendo la repetición “C” como la mejor de las cinco (Fig. 4).
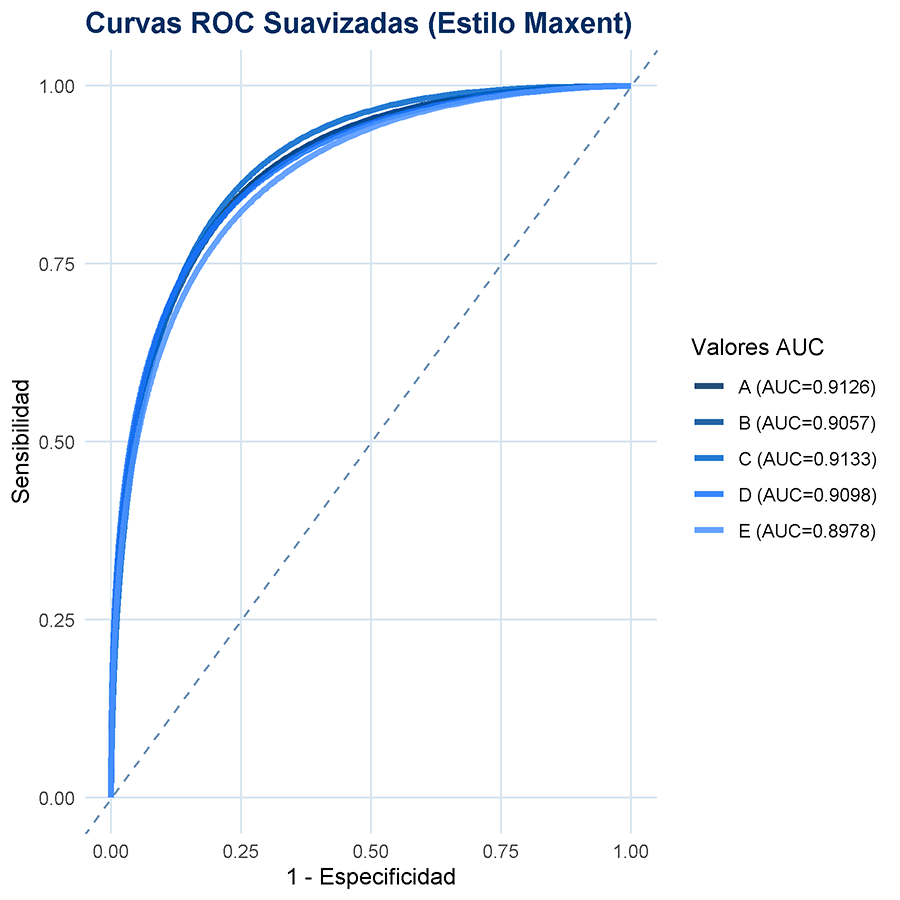
Figura 4. Curvas “ROC” según los valores “AUC” de las 5 repeticiones generadas en el modelo. Nótese que el mayor valor de “AUC” lo tuvo la repetición “C” (0.9133) en el modelo, considerándose el mejor para el análisis de las áreas de distribución potencial de la especie.
Figure 4. ROC curves based on the AUC values from the 5 repetitions generated by the model. Note that the highest "AUC" value corresponded to repetition "C" (0.9133) in the model, was considered the best for the analysis of the potential distribution areas of the species.
Las áreas de distribución potencial de A. cearensis en la región (Fig. 5) indican que la categoría “Bajo” representó la mayor superficie con 34.02 % (28 676.76 km2), mientras que la categoría “Alto” tuvo menor superficie con 15.56 % (13 114.53 km2). Las áreas de distribución potencial de las categorías de “Muy alto” y “Alto” se concentran al noreste de la región, siendo áreas de menor extensión, pero con alta probabilidad de ocurrencia de la especie.
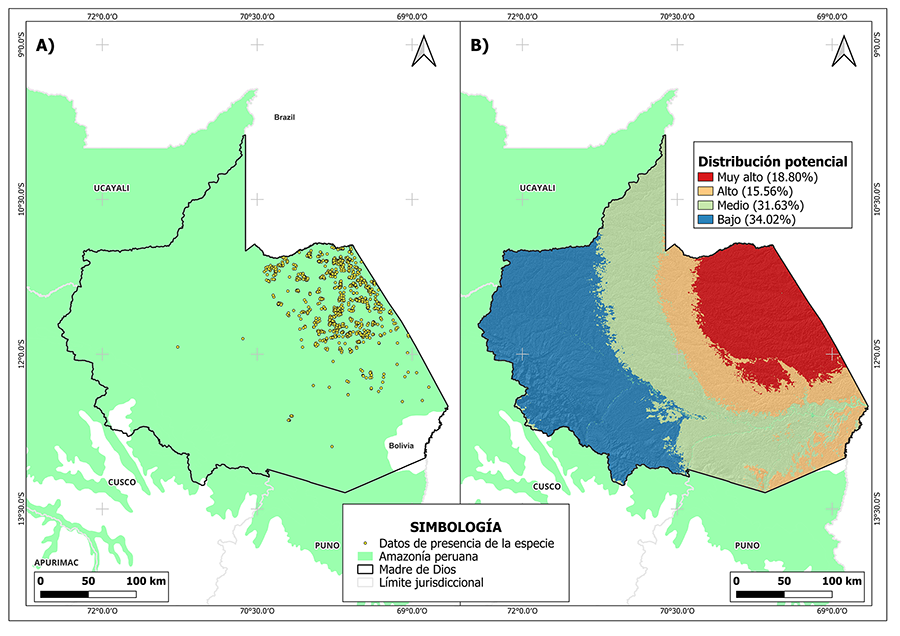
Figura 5. A) Datos de presencia de Amburana cearensis. B) Distribución potencial de Amburana cearensis en la Amazonía sureste peruana (Madre de Dios).
Figure 5. A) Data on the presence of Amburana cearensis. B) Potential distribution of Amburana cearensis in the southeastern Peruvian Amazon (Madre de Dios).
Discusión
Los modelos de distribución de especies utilizan como base el principio matemático de “entropía máxima” para predecir las “áreas de alta probabilidad de ocurrencia” según la interacción de los datos de presencia y variables ambientales (Merow et al., 2013; Duan et al., 2025). En el estudio, las variables ambientales de “WorldClim” que mayor peso ecológico tuvieron fueron la “Isotermalidad” (Bio03) y la “Temperatura media anual” (Bio01). En el caso de la variable edáfica, el “contenido de carbono orgánico del suelo en la fracción tierra fina” (Soc) destacó como condición importante en la distribución potencial de A. cearensis en la región.
En ese contexto, las variables bioclimáticas de “Isotermalidad” y “Temperatura media anual” sugieren que la A. cearensis requiere condiciones térmicas estables, típicas de zonas tropicales como la Amazonía, pero con suficiente variación estacional para equilibrar sus ciclos fenológicos (floración, fructificación y reproducción), como el caso de tolerar condiciones secas durante el año (Leite, 2005). Por otro lado, la contribución de la variable de “contenido de carbono orgánico del suelo en la fracción tierra fina” señala que la disponibilidad de nutrientes y la capacidad de retención de humedad del suelo son condiciones edáficas críticas, posiblemente asociadas a su estrategia de crecimiento dentro de los bosques tropicales (de Souza y Scariot, 2012). Por ende, estas variables ambientales aportan evidencia cuantitativa sobre las condiciones que limitan su establecimiento, crecimiento y desarrollo en los bosques de la Amazonía (Ramos et al., 2004; Alves et al., 2021; López et al., 2022).
De acuerdo con los resultados de la validación del modelo de distribución potencial, se reportó en MaxEnt un valor alto de “AUC” de 0.9133, y, por tanto, el que se utilizó para representar las áreas de distribución potencial de A. cearensis en el área de estudio. En ese sentido, Mas et al. (2013) y Cárdenas et al. (2023) señalan que los valores de “AUC” cercanos a “1” manifiestan que existe mayor grado de precisión entre las áreas de mayor probabilidad de ocurrencia, considerándose la validación del modelo como “excelente” (>0.9).
Por otro lado, existe una preocupación por las áreas de “alta probabilidad de ocurrencia” de A. cearensis, donde se observa una situación crítica de distribución potencial de la especie, ya que la categoría de “Bajo” es el que mayor superficie posee (34.02 %) frente a las categorías de “Muy alto” y “Alto” con 18.80 % y 15.56 %, respectivamente, el cual podría comprometer en el tiempo las áreas “idóneas” donde esta especie forestal se desarrolla potencialmente en la Amazonía sureste peruana. En ese caso, como medidas de manejo y protección se sugiere proponer la implantación de un corredor ecológico o un área protegida de categoría “intangible” para conservar la biodiversidad y evitar la fragmentación de hábitat de las poblaciones de esta especie forestal, así como trabajar con los actores locales (comunidades, municipalidades o instituciones de investigación) para asegurar la viabilidad y gobernanza ambiental relacionado a la conservación de A. cearensis en el noreste del área de estudio.
Asimismo, las categorías “Muy alto” y “Alto” se localizan en zonas donde existe intervención de actividades antrópicas, como la ganadería y agricultura, de acuerdo con la cobertura terrestre del 2024 de MapBiomas Perú (2026) (Fig. A4 del Anexo), lo cual hace que la A. cearensis se vea limitado en su distribución potencial pese a estar en estado de conservación “En Peligro” según la Lista Roja (Oliveira et al., 2019; Brandes et al., 2020; Barstow, 2024). Sumado a ello, las áreas de distribución potencial de esta especie se ven comprometidas en el futuro debido a su posible incorporación para zonas de concesiones forestales con fines maderables (Tarazona y Miyasiro-López, 2020; Alarcon-Aguirre et al., 2021; Soria-Díaz et al., 2024b).
A pesar de las limitaciones que generan los estudios de modelamiento de distribución potencial, como la concentración de datos de presencia de la especie en una región específica del área de estudio y la extrapolación fuera de condiciones ambientales conocidas, son consideradas herramientas importantes para identificar áreas potencialmente adecuadas dentro de un área geográfica, con el propósito de establecer estrategias de conservación de especies. En ese sentido, los resultados obtenidos ayudaron a identificar y cuantificar las áreas críticas de “alta probabilidad de ocurrencia” en la región donde A. cearensis se desarrolla potencialmente en la Amazonía sureste peruana, pese a su estado de conservación “En Peligro” por la Lista Roja (Brandes et al., 2020; IUCN, 2024). Además, las actividades antrópicas y los cambios de uso del suelo en el futuro podrían jugar un rol adverso en la alteración de sus hábitats y, por ende, en la supervivencia de esta especie forestal en el tiempo.
Conclusiones
Se determinó que menos del 35 % de la superficie de la región presenta condiciones óptimas para la distribución potencial de A. cearensis. Este hallazgo es relevante considerando que se trata de una especie forestal clasificada como "En Peligro" por la Lista Roja de la UICN en América del Sur.
Las variables que más contribuyeron en el modelo fueron la "Isotermalidad", la "Temperatura media anual" y el "Contenido de carbono orgánico del suelo en la fracción tierra fina", factores clave que condicionan la distribución potencial de A. cearensis en la región.
Nuestros resultados destacan la necesidad de proteger a la especie debido a que las áreas con mayor idoneidad de hábitat son relativamente limitadas y restringidas con 15 847.4 km2 (18.80 %) clasificadas como "Muy alta" y 13 114.53 km2 (15.56 %) como "Alta". Estas zonas, además, están bajo presión por las actividades antrópicas en el área de estudio.
Nuestro estudio proporciona una base espacial importante para la implementación de estrategias de conservación de A. cearensis. Estas áreas con alta idoneidad de hábitat identificadas para la especie pueden ser priorizadas para su protección y manejo sostenible.
Esta información es relevante en la toma de decisiones por instituciones públicas y privadas del sector forestal y ambiental de países amazónicos como Perú, Bolivia y Brasil, donde la especie también está presente, para orientar la delimitación de áreas de conservación, el diseño de programas de restauración ecológica y la implementación de medidas de manejo sostenible.
Contribución de los autores
HFSD: Concepción del estudio, supervisión, adaptación y revisión de la metodología, redacción, revisión y edición del texto. RFFQ: Concepción del estudio, análisis formal, redacción y borrador original. MVDF: Adquisición de fondos e investigación. RCL: Análisis formal, visualización y revisión del texto. SDS: Recursos e investigación. BSS: Recursos y supervisión. ATMR: Validación y visualización. JEGC: Recursos y validación. JDJO: Recursos.
Disponibilidad de datos y código
Los datos utilizados en este trabajo, como las variables ambientales y el script ejecutado en R bajo la interfaz de JupyterLab, se encuentran disponibles en https://doi.org/10.5281/zenodo.19777764. Sin embargo, el interesado puede solicitar información geográfica de A. cearensis del área de estudio directamente a OSINFOR (www.osinfor.gob.pe).
Financiación, permisos requeridos, potenciales conflictos de interés y agradecimientos
El Vicerrectorado de Investigación de la Universidad Nacional Amazónica de Madre de Dios (UNAMAD), Perú, ha financiado esta investigación (código N° 2023-lGI-28). Agradecemos a los revisores anónimos por sus valiosos comentarios que ayudaron en gran medida a mejorar este trabajo. Además, queremos expresar nuestro agradecimiento a todos los miembros del equipo por su valiosa contribución en el desarrollo del presente estudio.
Los autores declaran no tener ningún conflicto de intereses.
Abdelaal, M., Fois, M., Fenu, G., & Bacchetta, G. (2019). Using MaxEnt modeling to predict the potential distribution of the endemic plant Rosa arabica Crép. In Egypt. Ecological Informatics, 50, 68-75. https://doi.org/10.1016/j.ecoinf.2019.01.003
Abrego, N., & Ovaskainen, O. (2023). Evaluating the predictive performance of presence–absence models: Why can the same model appear excellent or poor? Ecology and Evolution, 13(12), e10784. https://doi.org/10.1002/ece3.10784
Aguilar, G. D., Farnworth, M. J., & Winder, L. (2015). Mapping the stray domestic cat (Felis catus) population in New Zealand: Species distribution modelling with a climate change scenario and implications for protected areas. Applied Geography, 63, 146-154. https://doi.org/10.1016/j.apgeog.2015.06.019
Alarcon-Aguirre, G., Canahuire-Robles, R. R., Guevara-Duarez, F. M., Rodríguez-Achata, L., Gallegos-Chacón, L. E., & Garate-Quispe, J. (2021). Dinámica de la pérdida de bosques en el sureste de la Amazonia peruana: Un estudio de caso en Madre de Dios: Ecosistemas, 30(2), Article 2. https://doi.org/10.7818/ECOS.2175
Allouche, O., Tsoar, A., & Kadmon, R. (2006). Assessing the accuracy of species distribution models: Prevalence, kappa and the true skill statistic (TSS). Journal of Applied Ecology, 43(6), 1223-1232. https://doi.org/10.1111/j.1365-2664.2006.01214.x
Almeida, J. P. N. de, Lessa, B. F. da T., Pinheiro, C. L., Gomes, F. M., Medeiros, S., & Silva, C. C. (2017). Germination and development of Amburana cearensis seedlings as influenced by seed weight, light and temperature. Acta Scientiarum. Agronomy, 39, 525-533. https://doi.org/10.4025/actasciagron.v39i4.32786
Alves, L. L. B., de Morais, E. R. C., de Santana, J. C. A., Faustino, S. J. B., & Hernandez, M. C. R. (2021). Growth of cumaru (Amburana cearensis) seedlings irrigated with industrial effluent. Environmental Science and Pollution Research, 28(17), Article 17. https://doi.org/10.1007/s11356-021-13273-2
Augustin, A. F., Lima, D. F., Vieira, F. C. S., & Caddah, M. K. (2025). Species distribution modeling of two rare endemic Myrtaceae from the Brazilian Atlantic Forest: Challenges in conserving “invisible species”. Flora, 333, 152854. https://doi.org/10.1016/j.flora.2025.152854
Bachi, L., Ribeiro, S. C., Hermes, J., & Saadi, A. (2020). Cultural Ecosystem Services (CES) in landscapes with a tourist vocation: Mapping and modeling the physical landscape components that bring benefits to people in a mountain tourist destination in southeastern Brazil. Tourism Management, 77, 104017. https://doi.org/10.1016/j.tourman.2019.104017
Barocas, A., Tobler, M. W., Abanto Valladares, N., Alarcon Pardo, A., Macdonald, D. W., & Swaisgood, R. R. (2023). Protected areas maintain neotropical freshwater bird biodiversity in the face of human activity. Ecological Indicators, 150, 110256. https://doi.org/10.1016/j.ecolind.2023.110256
Barstow, M. (2024). IUCN Red List of Threatened Species: Amburana cearensis. IUCN Red List of Threatened Species, 1-2. https://doi.org/https://dx.doi.org/10.2305/IUCN.UK.2024-1.RLTS.T32291A67743532.en
Brandes, A. F. das N., Novello, B. Q., Domingues, G. de A. F., Barros, C. F., & Tamaio, N. (2020). Endangered species account for 10% of Brazil’s documented timber trade. Journal for Nature Conservation, 55, 125821. https://doi.org/10.1016/j.jnc.2020.125821
Cárdenas, G. P., Bravo, N., Barboza, E., Salazar, W., Ocaña, J., Vázquez, M., Lobato, R., Injante, P., & Arbizu, C. I. (2023). Current and Future Distribution of Shihuahuaco (Dipteryx spp.) under Climate Change Scenarios in the Central-Eastern Amazon of Peru. Sustainability, 15(10), Article 10. https://doi.org/10.3390/su15107789
Cotrina-Sánchez, A., Rojas-Briceño, N. B., Bandopadhyay, S., Ghosh, S., Torres-Guzmán, C., Oliva, M., Guzman, B. K., & Salas-López, R. (2021). Biogeographic Distribution of Cedrela spp. Genus in Peru Using MaxEnt Modeling: A Conservation and Restoration Approach. Diversity, 13(6), Article 6. https://doi.org/10.3390/d13060261
de Souza, E., & Scariot, A. O. (2012). Tree seedling survival and growth in logged and undisturbed seasonal deciduous forest fragments in central Brazil. Journal of Forest Research, 17(2), 193-201. https://doi.org/10.1007/s10310-011-0294-1
Duan, Y., Bai, H., Du, Z., Liu, Y., Li, L., Lu, K., Wang, Z., Di, L., Qin, Y., & Liu, A. P. M. (2025). Maxent modeling for predicting the potential distribution of Hippophae Linn species. Tropical Ecology, 66(1), 132-145. https://doi.org/10.1007/s42965-025-00372-1
Elith, J., Phillips, S. J., Hastie, T., Dudík, M., Chee, Y. E., & Yates, C. J. (2011). A statistical explanation of MaxEnt for ecologists. Diversity and Distributions, 17(1), Article 1. https://doi.org/10.1111/j.1472-4642.2010.00725.x
Farrell, A., Wang, G., Rush, S. A., Martin, J. A., Belant, J. L., Butler, A. B., & Godwin, D. (2019). Machine learning of large-scale spatial distributions of wild turkeys with high-dimensional environmental data. Ecology and Evolution, 9(10), 5938-5949. https://doi.org/10.1002/ece3.5177
Fick, S. E., & Hijmans, R. J. (2017). WorldClim 2: New 1-km spatial resolution climate surfaces for global land areas. International Journal of Climatology, 37(12), Article 12. https://doi.org/10.1002/joc.5086
Franco, L. F., Oya, B. H. K., Castro-Souza, R. A., & Tavares, G. C. (2025). Two new species of Leptopsis Desutter-Grandcolas, 1996 (Orthoptera: Phalangopsidae: Phalangopsinae) from the Brazilian Amazon rainforest with insights from potential distribution models for the genus. Zoologischer Anzeiger, 319, 134-152. https://doi.org/10.1016/j.jcz.2025.09.007
García, L., Veneros, J., Chavez, S. G., Oliva, M., & Rojas-Briceño, N. B. (2022). World historical mapping and potential distribution of Cinchona spp. In Peru as a contribution for its restoration and conservation. Journal for Nature Conservation, 70, 126290. https://doi.org/10.1016/j.jnc.2022.126290
GBIF. (2023). Amburana cearensis (Allemão) A.C.Sm. In GBIF Secretariat (The GBIF Backbone Taxonomy UICN; Versión Digital). The GBIF Backbone Taxonomy. https://doi.org/10.15468/39omei
Graham, M. H. (2003). Confronting Multicollinearity in Ecological Multiple Regression. Ecology, 84(11), 2809-2815. https://doi.org/10.1890/02-3114
Grohmann, C. H. (2018). Evaluation of TanDEM-X DEMs on selected Brazilian sites: Comparison with SRTM, ASTER GDEM and ALOS AW3D30. Remote Sensing of Environment, 212, 121-133. https://doi.org/10.1016/j.rse.2018.04.043
Hou, Y., Wu, L., Jiang, F., Fan, X., Luo, D., Ai, X., Wang, J., & Yang, M. (2025). Predicting the potential distribution and climatic response of the endangered medicinal and edible species, Anoectochilus roxburghii, using an optimized MaxEnt model. Scientific Reports, 15(1), 40978. https://doi.org/10.1038/s41598-025-24730-0
IUCN. (2024). IUCN Red List of Threatened Species: Amburana cearensis [Red List of Amburana cearensis]. IUCN Red List of Threatened Species. https://www.iucnredlist.org/species/32291/9687595
Keil, P., Belmaker, J., Wilson, A. M., Unitt, P., & Jetz, W. (2013). Downscaling of species distribution models: A hierarchical approach. Methods in Ecology and Evolution, 4(1), 82-94. https://doi.org/10.1111/j.2041-210x.2012.00264.x
Kling, M. M., Baer, K. C., & Ackerly, D. D. (2024). A tree’s view of the terrain: Downscaling bioclimate variables to high resolution using a novel multi-level species distribution model. Ecography, 2024(9), e07131. https://doi.org/10.1111/ecog.07131
Laurente, M. (2015). Modelación de los efectos del cambio climático en la distribución de cedrela odorata l. “Cedro” en la amazonia peruana. The Biologist, 13(2), 213-224.
Leite, E. J. (2005). State-of-knowledge on Amburana cearensis (Fr. Allem.) A.C. Smith (Leguminosae: Papilionoideae) for genetic conservation in Brazil. Journal for Nature Conservation, 13(1), 49-65. https://doi.org/10.1016/j.jnc.2004.07.003
Lisboa, F., Guimarães, Í., Guimarães, J., Mendes, R., Mendes, L., & Protásio, T. (2016). Potencial de utilização da madeira de Sclerolobium paniculatum, Myracrodruon urundeuva e Amburana cearensis para produção de compensados. Scientia Forestalis, 44, 129-135. https://doi.org/10.18671/scifor.v44n109.12
López, L., Villalba, R., & Stahle, D. (2022). High-fidelity representation of climate variations by Amburana cearensis tree-ring chronologies across a tropical forest transition in South America. Dendrochronologia, 72, 125932. https://doi.org/10.1016/j.dendro.2022.125932
Mahmoud, A. R., Farahat, E. A., Hassan, L. M., & Halmy, M. W. A. (2025). Remotely sensed data contribution in predicting the distribution of native Mediterranean species. Scientific Reports, 15(1), 12475. https://doi.org/10.1038/s41598-025-94569-y
MapBiomas Perú. (2026). Mapa de cobertura y uso del Perú (2024) (Versión Colección 3 Mapbiomas) [Base de datos]. https://peru.mapbiomas.org/. https://peru.mapbiomas.org/colecciones-de-mapbiomas-peru/
Mas, J.-F., Soares Filho, B., Pontius, R., Farfán Gutiérrez, M., & Rodrigues, H. (2013). A Suite of Tools for ROC Analysis of Spatial Models. ISPRS International Journal of Geo-Information, 2(3), Article 3. https://doi.org/10.3390/ijgi2030869
Mathur, M., & Mathur, P. (2024). Ecological niche modelling of Tecomella undulata (Sm.) Seem: An endangered (A2a) tree species from arid and semi-arid environment imparts multiple ecosystem services. Tropical Ecology, 65(1), 59-80. https://doi.org/10.1007/s42965-023-00311-y
Mathur, M., Mathur, P., & Purohit, H. (2023). Ecological niche modelling of a critically endangered species Commiphora wightii (Arn.) Bhandari using bioclimatic and non-bioclimatic variables. Ecological Processes, 12(1), Article 1. https://doi.org/10.1186/s13717-023-00423-2
Merow, C., Smith, M. J., & Silander, J. A. (2013). A practical guide to MaxEnt for modeling species’ distributions: What it does, and why inputs and settings matter. Ecography, 36(10), Article 10. https://doi.org/10.1111/j.1600-0587.2013.07872.x
Morales, N. S., Fernández, I. C., & Baca-González, V. (2017). MaxEnt’s parameter configuration and small samples: Are we paying attention to recommendations? A systematic review. PeerJ, 5, e3093. https://doi.org/10.7717/peerj.3093
Oliveira, M. M., dos Santos Galvão, E. K., de Souza, C. L. M., de, Boaventura, V., de Castro Neto, M. T., de Oliveira, L. M., & Pelacani, C. R. (2019). Crescimento e partição de massa seca em plantas jovens de amburana (Amburana cearensis (Fr. All.) AC Smith) e de umbuzeiro (Spondias tuberosa Arr. Cam.). Ciência Florestal, 29(3), Article 3. https://doi.org/10.5902/1980509827189
O’Loughlin, F. E., Paiva, R. C. D., Durand, M., Alsdorf, D. E., & Bates, P. D. (2016). A multi-sensor approach towards a global vegetation corrected SRTM DEM product. Remote Sensing of Environment, 182, 49-59. https://doi.org/10.1016/j.rse.2016.04.018
OSINFOR. (2024). Información georreferenciada de Amburana cearensis (Allemão) en el departamento de Madre de Dios (Información Geoespacial Organismo de Supervisión de los Recursos Forestales y de Fauna Silvestre; Versión 1) [Digital]. Organismo de Supervisión de los Recursos Forestales y de Fauna Silvestre. https://www.osinfor.gob.pe/fuentes/publicaciones/
Phillips, S. J. (2017). A Brief Tutorial on MaxEnt (pp. 1-3). American Museum of Natural History. https://biodiversityinformatics.amnh.org/open_source/maxent/
Phillips, S. J., Anderson, R. P., & Schapire, R. E. (2006). Maximum entropy modeling of species geographic distributions. Ecological Modelling, 190(3), 231-259. https://doi.org/10.1016/j.ecolmodel.2005.03.026
Phillips, S. J., Anderson, R. P., Dudík, M., Schapire, R. E., & Blair, M. E. (2017). Opening the black box: An open-source release of Maxent. Ecography, 40(7), Article 7. https://doi.org/10.1111/ecog.03049
Phillips, S. J., Dudík, M., & Schapire, R. E. (2025). Maxent software for modeling species niches and distributions (Versión 3.4.4) [Software]. Princeton University. https://biodiversityinformatics.amnh.org/open_source/maxent/
Plasencia-Vázquez, A. H., Vilchez-Ponce, C. R., Ferrer-Sánchez, Y., & Veloz-Portillo, C. E. (2022). Efecto del cambio climático sobre la distribución potencial del hongo Moniliophthora roreri y el cultivo de cacao (Theobroma cacao) en Ecuador continental. REVISTA TERRA LATINOAMERICANA, 40. https://doi.org/10.28940/terra.v40i0.1151
Poggio, L., de Sousa, L. M., Batjes, N. H., Heuvelink, G. B. M., Kempen, B., Ribeiro, E., & Rossiter, D. (2021). SoilGrids 2.0: Producing soil information for the globe with quantified spatial uncertainty. SOIL, 7(1), Article 1. https://doi.org/10.5194/soil-7-217-2021
Pontius, R. G., & Parmentier, B. (2014). Recommendations for using the relative operating characteristic (ROC). Landscape Ecology, 29(3), Article 3. https://doi.org/10.1007/s10980-013-9984-8
Portal-Cahuana, L. A., Fontana, C., Assis-Pereira, G., Groenendijk, P., Roig, F. A., & Tomazello-Filho, M. (2023). Thirty-four years of dendrochronological studies in Perú: A review of advances and challenges. Dendrochronologia, 78, 126058. https://doi.org/10.1016/j.dendro.2023.126058
Project Jupyter. (2025). JupyterLab Software (Versión 4.2.3) [Python 3.10]. Jupyter Foundation. https://jupyter.org/
Pulido, V. (2021). Colonización de áreas deforestadas de la Amazonia peruana por la lechuza de los arenales Athene cunicularia (Molina, 1782). Ecología Aplicada, 20(2), 197-206. https://doi.org/10.21704/rea.v20i2.1810
Python Software Foundation. (2021). Python (Version 3.10) [Computer software] (Versión 3.10) [Python 3.10]. Python Software Foundation. https://www.python.org/
QGIS Development Team. (2025). QGIS Geographic Information System (Versión 3.40) [Python, C++]. Open Source Geospatial Foundation. https://www.qgis.org/
R Core Team. (2024). R: A Language and Environment for Statistical Computing (Versión 4.4.2) [R]. R Foundation for Statistical Computing. https://www.R-project.org/
Radosavljevic, A., & Anderson, R. P. (2014). Making better Maxent models of species distributions: Complexity, overfitting and evaluation. Journal of Biogeography, 41(4), 629-643. https://doi.org/10.1111/jbi.12227
Ramos, K. M. O., Felfili, J. M., Fagg, C. W., Sousa-Silva, J. C., & Franco, A. C. (2004). Desenvolvimento inicial e repartição de biomassa de Amburana cearensis (Allemao) A.C. Smith, em diferentes condições de sombreamento. Acta Botanica Brasilica, 18, 351-358. https://doi.org/https://doi.org/10.1590/S0102-33062004000200014
Shcheglovitova, M., & Anderson, R. P. (2013). Estimating optimal complexity for ecological niche models: A jackknife approach for species with small sample sizes. Ecological Modelling, 269, 9-17. https://doi.org/10.1016/j.ecolmodel.2013.08.011
Soberón, J., & Nakamura, M. (2009). Niches and distributional areas: Concepts, methods, and assumptions. Proceedings of the National Academy of Sciences, 106(supplement_2), Article supplement_2. https://doi.org/10.1073/pnas.0901637106
Soberón, J., & Peterson, A. T. (2005). Interpretation of Models of Fundamental Ecological Niches and Species’ Distributional Areas. Biodiversity Informatics, 2, 1-10. https://doi.org/10.17161/bi.v2i0.4
Soria-Díaz, H. F., Graça, P. M. L. de A., Díaz-Salas, S. D. C., Chambi-Legoas, R., Reis, J. R. L. dos, & Soria-Solano, B. (2024a). Economic valuation of ecosystem services for the maintenance of tourism activity in the Central Amazon, Brazil. Floresta, 54(1), Article 1. https://doi.org/10.5380/rf.v54i1.95011
Soria-Díaz, H. F., Valeriano-Quispe, V. D., Da-Fonseca, M. V., Chambi-Legoas, R., Zevallos-Pollito, P. A., & Soria-Solano, B. (2024b). Multitemporal analysis of deforestation in a buffer zone in the southwestern Amazonia, Peru. Madera y Bosques, 30(3), Article 3. https://doi.org/10.21829/myb.2024.3032678
Tarazona, Y., & Miyasiro-López, M. (2020). Monitoring tropical forest degradation using remote sensing. Challenges and opportunities in the Madre de Dios region, Peru. Remote Sensing Applications: Society and Environment, 19, 100337. https://doi.org/10.1016/j.rsase.2020.100337
Teixeira, M. J., Machado, L. A. T., Artaxo, P., Calheiros, A., Corrêa, P., Franco, M. A., Shimbo, J., & Rizzo, L. V. (2025). Analyzing and forecasting the morphology of Amazon deforestation. Forest Ecology and Management, 586, 122662. https://doi.org/10.1016/j.foreco.2025.122662
Vieira, S. B., Carvalho, J. O. P. de, Gomes, J. M., Silva, J. C. F. da, & Ruschel, A. R. (2018). Cedrela odorata L. TEM POTENCIAL PARA SER UTILIZADA NA SILVICULTURA PÓS-COLHEITA NA AMAZÔNIA BRASILEIRA? Ciência Florestal, 28(3), Article 3. https://doi.org/10.5902/1980509833361
Wu, H., Zhang, Z., Xue, Z., Zhao, W., Sang, L., Wu, H., … Lu, K. (2025). Predicting the potential geographical distribution of peatlands in Northeast China based on the ensemble model. Global and Planetary Change, 252, 104866. https://doi.org/10.1016/j.gloplacha.2025.104866
Anexo / Annex
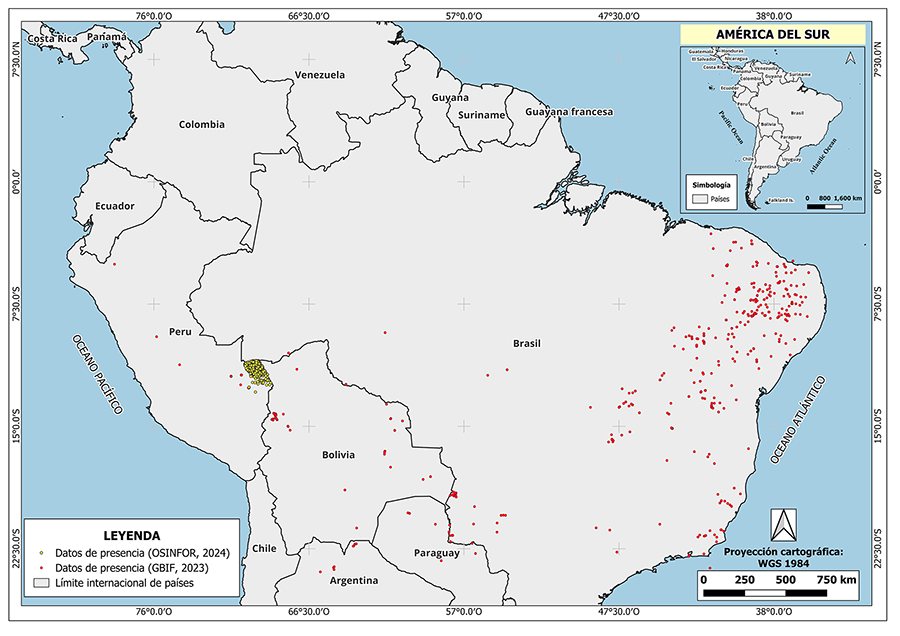
Figura A1. Distribución geográfica de Amburana cearensis en América del Sur. Nótese que los datos de presencia de la especie se distribuyen en los países de Brasil, Paraguay, Argentina, Bolivia y Perú.
Figure A1. Geographic distribution of Amburana cearensis in South America. Note that the species' occurrence records are distributed across Brazil, Paraguay, Argentina, Bolivia, and Peru.
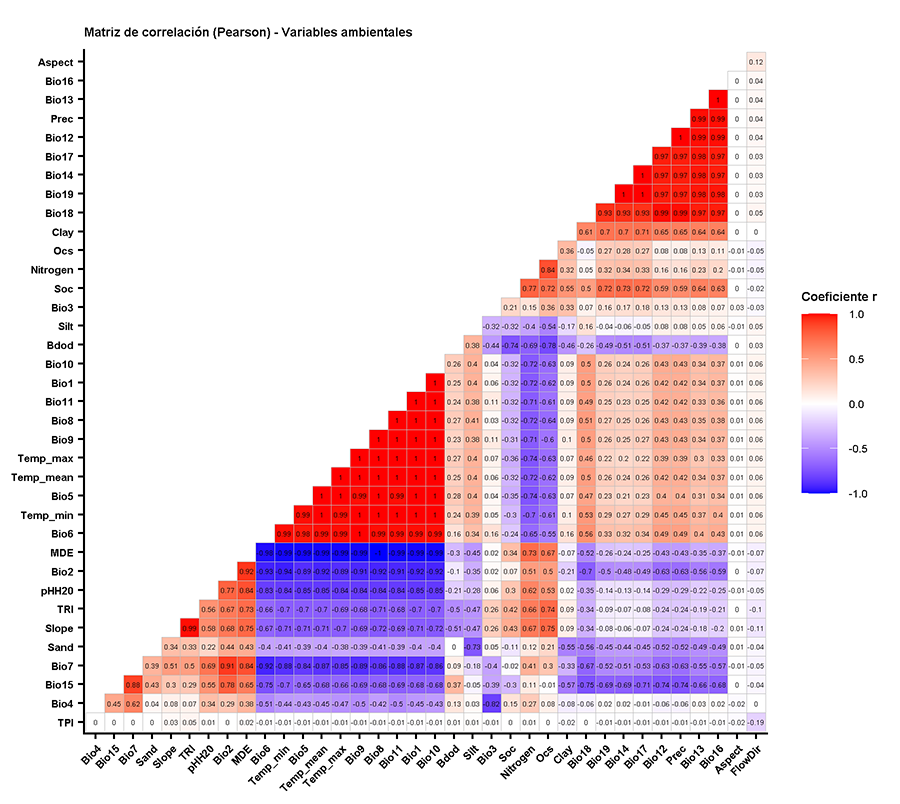
Figura A2. Correlación del coeficiente de Pearson (>0.8) de las variables ambientales. Solo 14 de 37 variables ambientales presentaron una multicolinealidad < 0.8 según el coeficiente de Pearson, por lo que fueron consideradas para la etapa de entrenamiento y validación del modelo en MaxEnt.
Figure A2. Pearson's correlation coefficient (>0.8) of the environmental variables. Only 14 out of 37 environmental variables exhibited multicollinearity <0.8 according to Pearson's coefficient and were thus considered for the training and validation stage of the MaxEnt model.
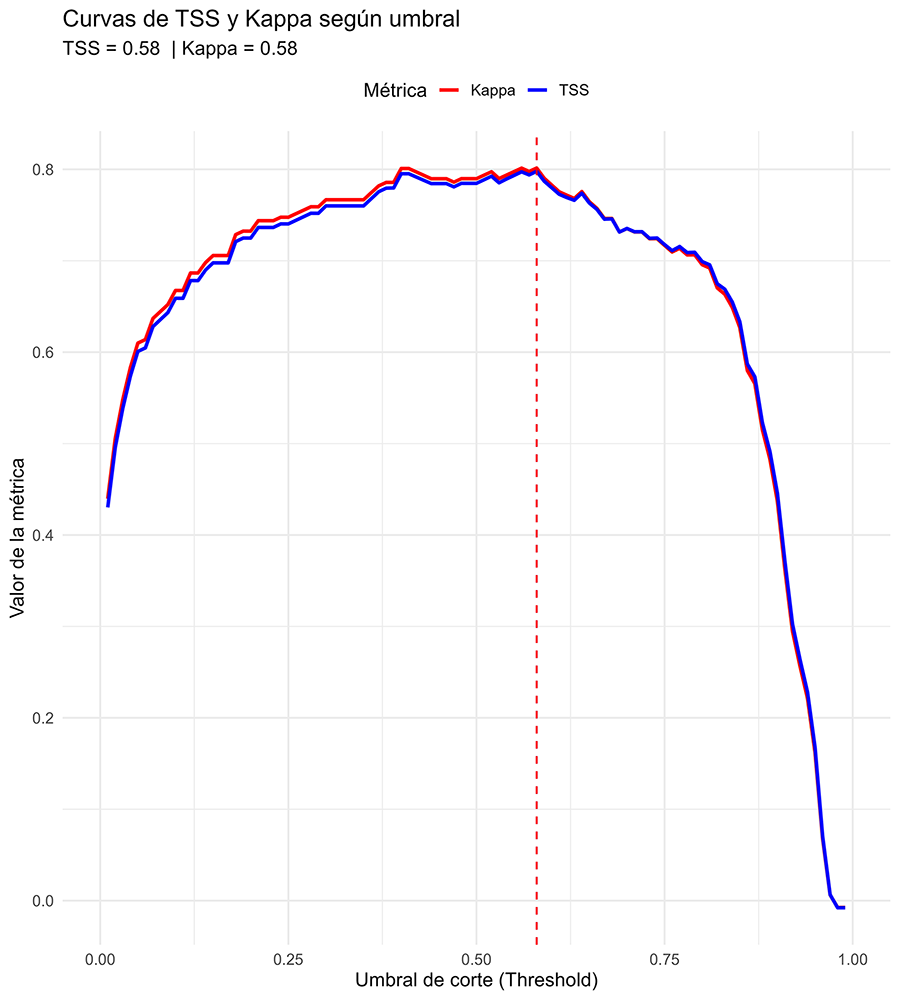
Figura A3. Métricas de validación del modelo de distribución potencial de Amburana cearensis: Curvas de “TSS” y “Kappa”. Se obtuvieron valores de 0.58 como “umbral de corte” en ambas métricas, indicando que valores cercanos a “1” reportan un equilibrio adecuado en el modelamiento de distribución potencial (Wu et al., 2025).
Figure A3. Validation metrics for the potential distribution model of Amburana cearensis: “TSS” and “Kappa” curves. A “cutoff threshold” of 0.58 was obtained for both metrics, indicating that values approaching '1' reflect an adequate balance in the modeling of potential distribution (Wu et al., 2025).
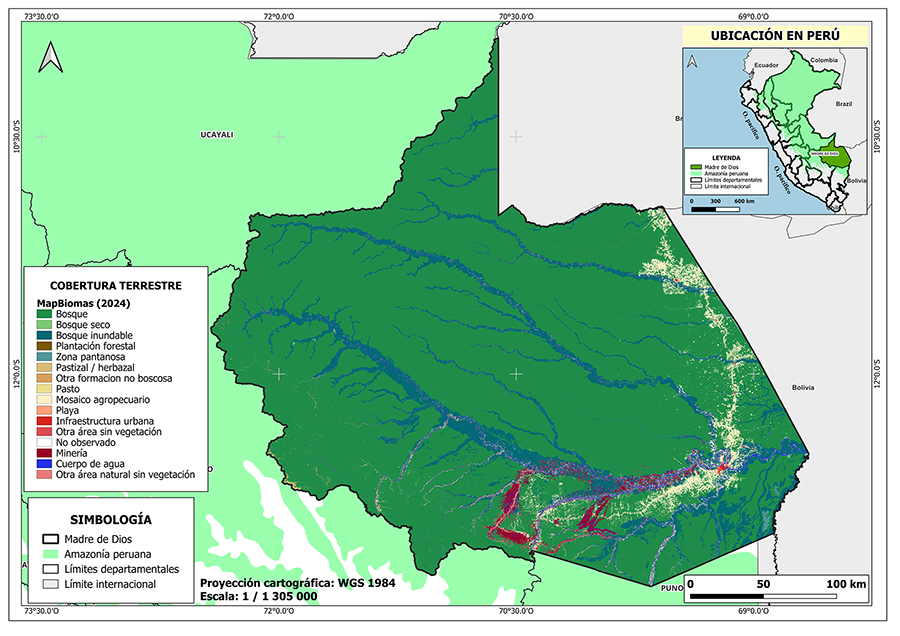
Figura A4. Cobertura terrestre del 2024 en la Amazonía sureste peruana (MapBiomas Perú, 2026). Nótese que las actividades antrópicas, como la agricultura y la ganadería (mosaico agropecuario), están reduciendo la cobertura forestal y comprometiendo las áreas de distribución potencial “muy alto” y “alto” del área de estudio en Madre de Dios, Perú.
Figure A4. Land cover in the southeastern Peruvian Amazon for 2024 (MapBiomas Perú, 2026). Note that anthropogenic activities, such as agriculture and livestock farming (agricultural mosaic), are reducing forest cover and compromising the "very high" and "high" potential distribution areas within the study area in Madre de Dios, Peru.